elocation-id: elocation-id: e4159
Se exploró la combinación de composta de la fracción orgánica de los residuos sólidos urbanos con un consorcio de hongos micorrízicos arbusculares para favorecer la nutrición fosforada de las plantas de maíz (Zea mays L.) y consecuentemente su crecimiento. Los objetivos fueron: evaluar la abundancia y composición de esporas de un consorcio de hongos micorrízicos arbusculares en este tipo de composta, determinar la capacidad de colonización de estas esporas y evaluar la aplicación conjunta de la composta y un inoculante compuesto por 12 especies de un consorcio de hongos micorrízicos arbusculares en el contenido de fósforo y crecimiento de las plantas de maíz. El experimento se realizó en la Ciudad de México en 2024 bajo condiciones de invernadero con duración de 53 días para el crecimiento de las plantas en suelo no esterilizado y esterilizado, con y sin composta, con y sin inoculante de un consorcio de hongos micorrízicos arbusculares. La composta presentó un promedio de 5 090 esporas kg-1 y tres taxones de un consorcio de hongos micorrízicos arbusculares; sin embargo, estas no colonizaron las raíces de las plantas. La colonización por un consorcio de hongos micorrízicos arbusculares que disminuyó a causa de la composta. La aplicación conjunta de composta e inoculante con un consorcio de hongos micorrízicos arbusculares incrementó el fósforo acumulado de las plantas crecidas en el suelo esterilizado, pero no bajo el suelo no esterilizado. La aplicación conjunta tuvo un efecto neutro en el crecimiento de las plantas. En conclusión, la composta de fracción orgánica de los residuos sólidos urbanos, enriquecida con un consorcio de hongos micorrízicos arbusculares no mejoró el contenido de fósforo ni el crecimiento de las plantas bajo la presencia de un consorcio de hongos micorrízicos arbusculares nativos.
Zea mays, competencia, fósforo, nativo.
El fósforo (P) es un nutriente requerido por las plantas para la división celular, el desarrollo de las raíces y la fotosíntesis, ya que constituye moléculas fundamentales como fosfolípidos, ácidos nucleicos y ATP (Bohórquez et al., 2024). La demanda de fertilizantes fosfatados para la producción agrícola ha incrementado al paso del tiempo a nivel mundial (Zou et al., 2022).
En México, la tasa anual ha incrementado ocho veces de 45 000 a 372 652 t entre 1961 y 2022 (FAOSTAT, 2024). Y los costos de adquisición van al alza debido a la explotación de roca fosfórica en pocos países; por ejemplo, Marruecos, China, Estados Unidos de América y Rusia (de Boer et al., 2019).
La fertilización orgánica es una alternativa para reducir la dependencia a este insumo y aprovechar fuentes renovables que están siendo subutilizadas, como la fracción orgánica de los residuos sólidos urbanos (FORSU), la cual representa el 46.4% de los RSU (SEMARNAT, 2020). En México, alrededor de 55 763 t de FORSU son generadas al día (SEMARNAT, 2020) y según Zou et al. (2022) este país necesita redoblar sus esfuerzos para incrementar el reciclaje de P de los residuos, ante la escasez de roca fosfórica.
Por otro lado, existen numerosas contribuciones en las que se ha comprobado los efectos benéficos de los hongos micorrízicos arbusculares (HMA) en la absorción de P y crecimiento de cultivos en suelo con déficit de P (Mohammadi et al., 2011). Estos hongos colonizan las raíces de las plantas para el intercambio de nutrientes, particularmente P, por hexosas y ácidos grasos (Roth y Paszkowski, 2017). Tanto la inoculación de HMA como la aplicación de composta en el suelo son prácticas de diversificación agrícola que podrían sostener el rendimiento de los cultivos a lo largo del tiempo (Tamburini et al., 2020).
La presencia de propágulos de HMA ha sido reconocida en las compostas aplicadas al suelo (Cavagnaro, 2015); sin embargo, poca atención se ha puesto en el estudio de las esporas de HMA de las compostas. Aunque estos hongos son simbiontes obligados de las plantas y requieren de un sistema radicular activo para crecer y esporular, es crucial determinar la supervivencia de sus estructuras de resistencia en el compostaje comunitario de pila estática aireada, que reduce la fase termófila en comparación con una pila de volteo (Villar et al., 2016).
La combinación de la aplicación de composta con un consorcio de HMA es novedosa porque diferentes de especies de HMA difieren en su capacidad de suministro de P a la planta (Sangabriel-Conde et al., 2014) y es recomendable usar inoculantes compuestos por varias especies de HMA para incrementar la probabilidad de asociaciones efectivas (Gou et al., 2024).
Por lo tanto, el estudio de la abundancia y composición de esporas de HMA de una composta de FORSU de pila estática aireada es relevante para el entendimiento de la nutrición vegetal regulada por estos hongos, especialmente cuando la composta e inoculante de HMA son simultáneamente aplicados al suelo, ya que la efectividad de los HMA inoculados depende de la competencia con la comunidad nativa de HMA (Xiao et al., 2020; Pulleman et al., 2022).
Por lo anterior, los objetivos de la investigación fueron: 1) evaluar la abundancia y composición de esporas de HMA contenidas en la composta del Huerto Roma Verde; 2) explorar la capacidad de colonización de estas esporas a través del crecimiento de plantas de maíz en suelo esterilizado; y 3) evaluar el P acumulado y crecimiento de las plantas ante la aplicación conjunta de la composta y un inoculante compuesto por 12 especies de HMA en suelo esterilizado y no esterilizado. La hipótesis fue que la aplicación conjunta de ambos insumos mejora el crecimiento de las plantas, así como el contenido de P en su biomasa.
El suelo y la composta fueron colectados del Huerto Roma Verde, en la Ciudad de México. La composta se produjo en el mismo sitio con la siguiente combinación de residuos orgánicos (porcentaje en volumen): residuos alimenticios (62%), paja (20%), gallinaza (9%), hojarasca (5%) y flores secas (4%). El compostaje de los residuos se realizó en pila estática aireada.
En el segundo día posterior al inicio del compostaje, la pila se encontraba en fase termófila con 61° C. Para el día 5, se encontraba en fase mesófila con 42° C y hasta el día 26, se encontraba en fase de enfriamiento con 30° C. Las propiedades fisicoquímicas del suelo y la composta se muestran en el Cuadro 1.
[i] CE= conductividad eléctrica; IG= índice de germinación; na= no aplica; *= basada en la estabilidad y madurez de la composta; 1= NADF-020-AMB-2011.
El índice de germinación (IG) determina la madurez de la composta por fitotoxicidad. Cuando su valor supera el 100%, la composta es considerada un fitoestimulante (Boruah et al., 2023). Este índice se calculó usando semillas de lechuga (Lactuca sativa L.) y una suspensión 1:5 con la composta (NADF-020-AMB-2011). La mitad del suelo se esterilizó tres veces a 120 °C y 15 PSI durante 50 min para remover las poblaciones nativas de HMA del suelo y determinar la capacidad de colonización micorrízica de las esporas de HMA de la composta.
El suelo contenía cuatro especies de HMA (Septoglomus constrictum, Funneliformis mosseae, Acaulospora scrobiculata y Diversispora sp.), con una concentración promedio de 69 esporas de HMA por 50 g de suelo.
El inoculante utilizado fue el Rizofermic® (Rz), el cual contiene 12 especies de HMA (Funneliformis mosseae, Funneliformis geosporus, Glomus macrocarpum, Glomus aggregatum, Rhizophagus intraradices, Acaulospora morrowiae, Acaulospora spinosa, Acaulospora scrobiculata, Gigaspora rosea, Gigaspora decipiens, Scutellospora pellucida y Claroideoglomus etunicatum). Rz contenía un promedio de 40 esporas por gramo, equivalente a 2 000 esporas en 50 g).
Se tomaron 15 submuestras de diferentes profundidades y puntos equidistantes de la pila para formar una muestra representativa que luego fue fraccionada en nueve partes. Cada fracción (peso seco) de 50 g fueron utilizados para la extracción de esporas, empleando el método descrito por Acoltzi-Conde et al. (2024).
La identificación taxonómica se basó en las descripciones del INVAM (https://invam.ku.edu/species-descriptions) tomando en cuenta caracteres morfológicos de las esporas como tamaño, color, tipo de hifa de germinación, capas de la pared, ornamentación de la pared y coloración al Melzer.
El experimento se realizó en macetas bajo condiciones de invernadero durante 53 días posteriores a la germinación de las plantas. Se utilizó un diseño factorial completamente balanceado, basado en dos condiciones de suelo (no esterilizado, esterilizado), dos condiciones de fertilización (sin composta, con composta) y dos condiciones de inoculación (con Rz, sin Rz), resultando ocho tratamientos (Cuadro 2). Para cada tratamiento se consideraron repeticiones.
La composta se agregó en una concentración del 2.5% para asemejar una aplicación de 10 t ha-1 (Cavagnaro, 2014), recomendada para sostener la materia orgánica del suelo con fines agrícolas (Sayara et al., 2024).
En cada maceta se sembraron tres semillas de maíz blanco (híbrido Hippopotamus de Asgrow®), pero cinco días después de la germinación se dejó una planta por maceta. Las macetas se regaron a mano manteniendo una capacidad de campo del 60% y reorganizaron al azar cada semana (Cavagnaro, 2014).
En la segunda y cuarta semana de crecimiento, se añadieron 10 ml de NH4NO3 al 5% a todas macetas. Las condiciones del invernadero fueron luz natural con temperatura promedio de 21 °C y humedad relativa del 66%.
Al término del experimento, se separaron 4 g de raíces (peso fresco) para la medición de la colonización micorrízica (CM). Las raíces se cortaron en fragmentos de 1 cm y se lavaron con agua destilada. Después se expusieron en KOH al 10% por 24 h, seguido de un lavado, una exposición en HCl al 1% por un minuto y una exposición en azul tripano al 0.05% por 4 h.
Los fragmentos se observaron a través de un microscopio estereoscópico (Nikon SMZ745T Modelo C-LEDS) para la detección de hifas, vesículas, arbúsculos o esporas de HMA y la determinación del porcentaje de CM con el método de intersección del cuadrante de Giovannetti y Mose, usando 120 fragmentos por tratamiento. El material vegetal, raíces y parte aérea, se secó a 70° C por 72 h para la medición de la biomasa.
La biomasa total de las plantas se pulverizó para cuantificar la concentración de P. De cada maceta se colectaron 150 g de suelo previamente homogeneizado. La concentración de P del suelo y planta fueron determinadas en 1 g de cada muestra (peso seco) con el método colorimétrico de Olsen y Sommers (1982), usando la solución digestora de ácido nítrico y perclórico, el reactivo vanadomolíbdico y el valor de la absorbancia en 470 nm. El P acumulado de la planta se determinó multiplicando la concentración de P por la biomasa seca de la planta.
Se utilizaron modelos lineales generalizados para probar los efectos del tipo de suelo (S), fertilización (F) e inoculación (I). En cada modelo se analizaron las interacciones de segundo (S×F, S×I, F×I) y tercer orden (S×F×I). Cuando las interacciones no fueron explicativas, el modelo fue simplificado escalonadamente hacia atrás. Los datos de CM iguales a cero se excluyeron del análisis para evitar sesgos. Los análisis se realizaron en el software R (R Core Team, 2024).
Se encontró un promedio (con error estándar) de 254.5(16.7) esporas en 50 g de composta. Los taxones identificados fueron: Glomus sp., Diversispora sp. y Tricispora nevadensis. Es posible que las esporas hayan ingresado a la composta a través de las raíces compostadas, la gallinaza y la hojarasca.
Después de la evaluación, una muestra representativa de gallinaza del huerto fue analizada y se encontraron 68 esporas en 50 g de gallinaza. La muestra se tomó del suelo, donde naturalmente puede haber esporas de HMA. Las esporas también pueden ser producidas dentro de las raíces (Mohammadi et al., 2011) y las esporas de los géneros Diversispora y Glomus han sido aisladas de la hojarasca (Rocha de Lima et al., 2024).
Comparadas con el tamaño de espora de Gigaspora spp., el grupo de HMA que produce esporas gigantes; por ejemplo, 500 µm (Chaudary et al., 2020), las esporas encontradas fueron pequeñas, 110, 85 y 65 µm para Diversispora sp., Glomus sp. y T. nevadensis, respectivamente.
La Figura 1a muestra raíces de maíz colonizadas por HMA y la Figura 1b, la condición de las plantas al final del experimento. En este estudio, las esporas de HMA de la composta no colonizaron las raíces del maíz, ya que no se encontraron estructuras fúngicas en el tratamiento con composta-Rz del suelo esterilizado (Figura 1a).
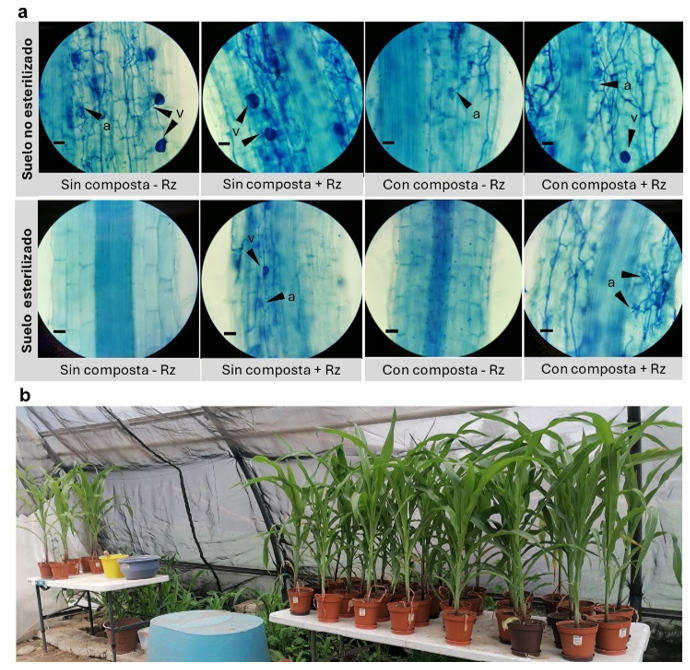
Las fluctuaciones de temperatura durante el compostaje pudieron haber afectado su capacidad de colonización, aunque no su estructura, dado que las esporas identificadas presentaron paredes con al menos dos capas.
La respuesta de colonización podría depender de la tolerancia de la especie fúngica y del periodo experimental. Hu et al. (2020) encontraron que las esporas de Rhizophagus irregularis, tras ser expuestas a 180 °C durante 30 min, lograron una CM del 16% en plantas de maíz con tres meses de crecimiento.
La CM fue afectada por la esterilización del suelo (p< 0.01) y por la fertilización (p< 0.01). La CM fue 22.9% menor en el suelo esterilizado que en el suelo no esterilizado. Lo anterior puede deberse la considerable diferencia en la abundancia de esporas entre el primero (de 0 a 320 por maceta) y el segundo (de 1 380 a 1 700 por maceta) (Cuadro 3).
Por el contrario, Zhang et al. (2011) encontraron que la CM fue mayor en suelo esterilizado que en suelo no esterilizado, debido a la competencia entre los HMA inoculados y los microorganismos nativos del suelo. Al parecer esta respuesta ocurre cuando el inoculante está compuesto por una sola especie de HMA (Gou et al., 2024).
La composta disminuyó la CM en un 21%, comparado con el control. En otros estudios, la reducción de la CM por efecto de la composta se atribuye al aumento colateral de P disponible (Pi) del suelo (Xiao et al., 2020). Posiblemente la composta aumentó el Pi del suelo, ya que la concentración de P total fue 6.5% mayor en el suelo con composta que sin composta (Cuadro 3).
La interacción S×F (p<0.01) mostró que la composta redujo la CM en el suelo esterilizado, pero no en el suelo no esterilizado (Figura 2a). Este resultado refleja que la presencia de HMA nativos puede enmascarar el efecto de la composta en la CM.
El P acumulado de las plantas tuvo respuesta a la fertilización (p< 0.001) e inoculación (p< 0.001), ya que el contenido de P fue 28.8% y 18.4% mayor en las plantas crecidas con composta y Rz en comparación con sus contrapartes (Cuadro 3). El incremento de P en las plantas crecidas con composta puede relacionarse con el aumento de P total del suelo con composta. Por otro lado, la interacción S×I (p< 0.001) mostró que el contenido de P de las plantas fue incrementado por Rz únicamente en el suelo esterilizado (Figura 2b).
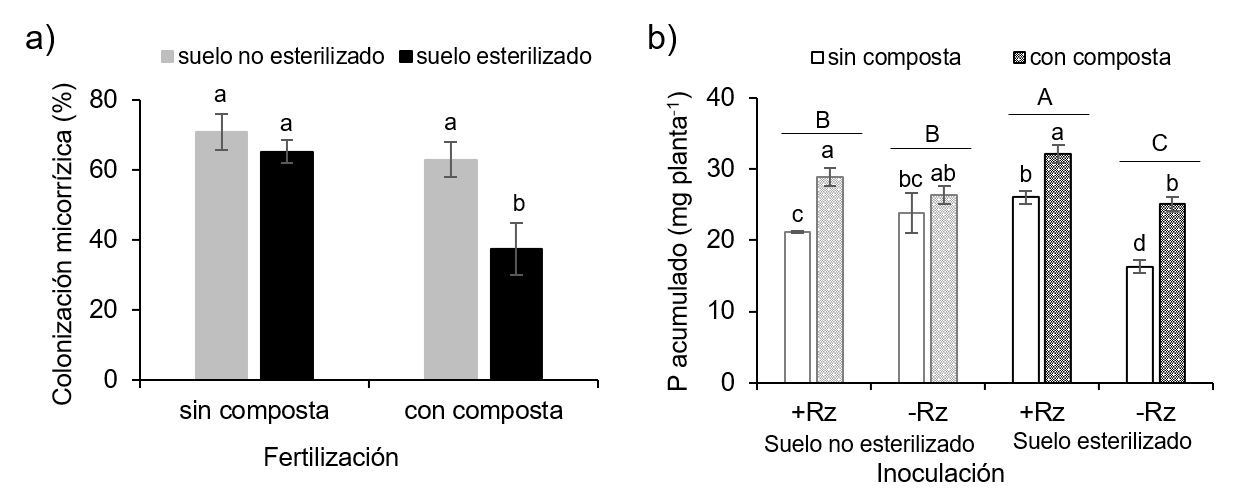
Para la interacción S×F×I (p< 0.01) se encontró que el contenido de P de la planta incrementó por la aplicación conjunta de composta y Rz únicamente bajo el suelo esterilizado (Figura 2b). Se ha reportado que los inoculantes de HMA pueden no ser efectivos en suelos donde la comunidad nativa de HMA está bien establecida (Pulleman et al., 2022).
Por otro lado, la función de los HMA inoculados podría sobreestimarse en suelos esterilizados donde el nivel de P es modificado (Hu et al., 2020). En este caso, el aumento de P en el suelo esterilizado probablemente favoreció una mayor absorción de P por la vía directa que por la vía micorrízica (Qin et al., 2022), dificultando la evaluación de la efectividad del inoculante.
En el suelo no esterilizado, el P acumulado tiende a aumentar con composta-Rz y tiende a disminuir sin composta+Rz (Figura 2b), sugiriendo que el inoculante no reemplaza el beneficio de la composta en la nutrición fosforada de las plantas crecidas en un suelo no alterado por calor. Cabe destacar que el P acumulado fue 31.9% menor en el tratamiento sin composta-Rz del suelo esterilizado que en el mismo tratamiento del suelo no esterilizado (Figura 2b), mostrando que los HMA nativos mejoraron la absorción de P del maíz.
El crecimiento de las plantas no fue afectado por la aplicación conjunta de composta y Rz, ya que la interacción F×I no explicó la variabilidad de la biomasa de las plantas (p= 0.4145). Posiblemente la fertilización nitrogenada basal pudo haber enmascarado el efecto de la aplicación de ambos insumos en el crecimiento de las plantas. En la biomasa de las plantas, la inoculación tuvo un efecto negativo (p< 0.01), 11.2% menor a las plantas sin Rz (Cuadro 3).
El P acumulado no estuvo positivamente relacionado con la biomasa de las plantas, lo que puede deberse a que los HMA inoculados suprimieron el crecimiento de las plantas, ya que las plantas asignan entre el 4 y 23% de sus fotosintatos a los HMA asociados (Salmeron-Santiago et al., 2021).
El P total del suelo fue afectado por la esterilización del suelo (p< 0.001) y fertilización (p< 0.01). El aumento de P total en el suelo esterilizado puede atribuirse a la reducción de microorganismos que absorben Pi (Doydora et al., 2020). Aunque el Pi es un componente del P total, es plausible suponer que los HMA inoculados incrementaron la competencia por Pi, ya que la concentración de P total casi fue significativamente menor en el suelo con Rz que sin Rz (p= 0.054).
La interacción S×I (p< 0.001) mostró que el inoculante disminuyó el P total en el suelo esterilizado, aunque no en el suelo no esterilizado (Figura 3a).
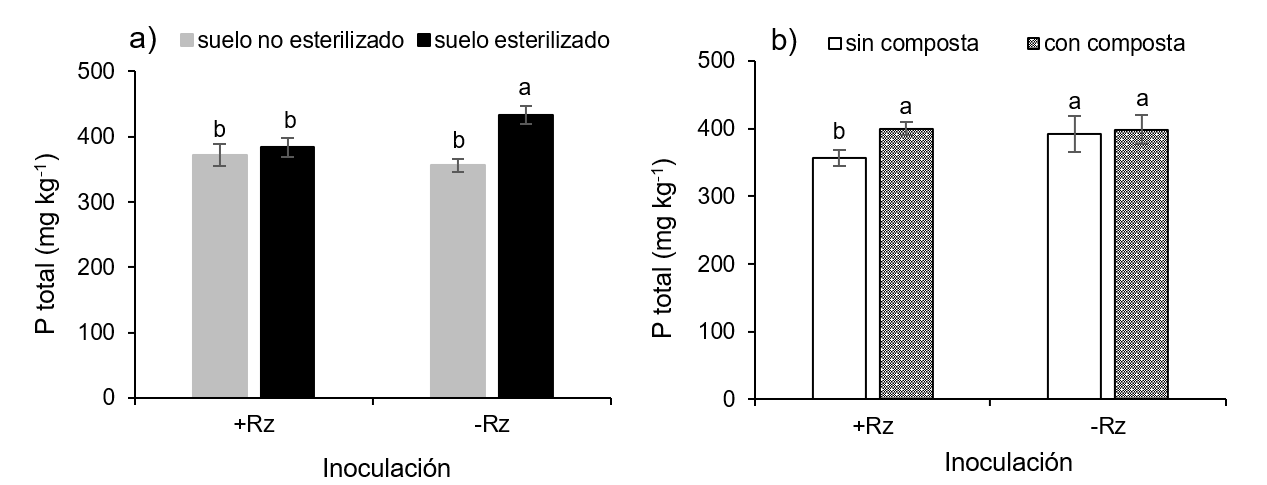
Esto sugiere un mecanismo de regulación de P por la microbiota del suelo frente al ingreso de varias especies HMA. La inoculación de varias especies de HMA puede aumentar la abundancia de bacterias nativas cuando se compara con la inoculación de una sola especie de HMA (Gou et al., 2024). Finalmente, la interacción S×F (p< 0.05) reveló que el inoculante redujo la concentración de P total en el suelo sin composta (Figura 3b), lo que sugiere que la composta podría amortiguar la competencia por P cuando los HMA son inoculados.
En la composta de FORSU del Huerto Roma Verde se identificaron tres especies de HMA mediante la caracterización morfológica de las esporas y se encontró un alto contenido de esporas por kilogramo (>5 000).
Sin embargo, estas esporas no fueron viables, ya que no se observó colonización en las raíces de las plantas cultivadas en suelo esterilizado durante el periodo experimental.
La hipótesis de que la aplicación conjunta de ambos insumos mejora el crecimiento de las plantas, así como el contenido de P en su biomasa no fue completamente rechazada, ya que su aplicación conjunta mejoró el contenido de P de las plantas en suelo esterilizado, aunque no en suelo no esterilizado.
Adicionalmente, la biomasa de las plantas no mejoró con la aplicación de ambos insumos en cualquier condición de suelo. Por lo tanto, la aplicación conjunta de los bioinsumos no mejora el contenido de P, ni la biomasa en maíz cuando existe una comunidad nativa de HMA en el suelo.
A la Dra. Yasmín Vazquéz-Santos y al MC. Eduardo Chimal-Sánchez por el entrenamiento en el aislamiento de esporas e identificación taxonómica. A la Dra. Dora Trejo-Aguilar por proporcionarnos el inoculante Rizofermic®. Este trabajo fue financiado por el Instituto Politécnico Nacional a través de la Secretaría de Investigación y Posgrado (SIP) en el marco del proyecto: uso de composta urbana y hongos suministradores de fósforo para optimizar el crecimiento del maíz.
Bohórquez-Sandoval, L. J.; García-Molano, J. F.; Pascual-Valero, J. A. and Ros-Muñoz, M. 2024. A comprehensive review on organic waste compost as an effective phosphorus source for sustainable agriculture. International Journal of Recycling of Organic Waste in Agriculture. 13(4):1-16. https://doi.org/10.57647/ijrowa-ybbx-kp03.
Mohammadi, K.; Khalesro, S.; Sohrabi, Y. and Heidari, G. 2011. A review: beneficial effects of the mycorrhizal fungi for plant growth. Journal of Applied Environmental and Biological Sciences. 1(9):310-319. https://www.researchgate.net/publication/235617686-A-Review-Beneficial-Effects-of-the-Mycorrhizal-Fungi-for-Plant-Growth.
Sedema. 2012. Norma ambiental para el Distrito Federal NADF-020-AMB-2011 que establece los requerimientos mínimos para la producción de composta a partir de la fracción orgánica de los residuos sólidos urbanos, agrícolas, pecuarios y forestales, así como las especificaciones mínimas de calidad de la composta producida o distribuida en el Distrito Federal. http://data.sedema.cdmx.gob.mx/padla/images/stories/normatividaddf/nadf-020-ambt-2011.pdf.
Qin, Z.; Peng, Y.; Yang, G.; Feng, G.; Christie, P.; Zhou, J.; Zhang, J.; Li, X. and Gai, J. 2022. Relationship between phosphorus uptake via indigenous arbuscular mycorrhizal fungi and crop response: A 32P-labeling study. Applied Soil Ecology. 180:104624. https://doi.org/10.1016/j.apsoil.2022.104624.
Salmeron-Santiago, I. A.; Martínez-Trujillo, M.; Valdez-Alarcón, J. J.; Pedraza-Santos, M. E.; Santoyo, G.; Pozo, M. J. and Chávez-Bárcenas, A. T. 2021. An updated review on the modulation of carbon partitioning and allocation in arbuscular mycorrhizal plants. Microorganisms. 10(1):1-20. https://doi.org/10.3390/microorganisms10010075.