elocation-id: elocation-id: e4264
El frijol de árbol Cajanus cajan (L.) Millsp., es una leguminosa con gran importancia alimenticia debido a su calidad nutricional y su capacidad de adaptación a condiciones adversas. El estudio se realizó durante el año 2024 en el Colegio de Postgraduados, Montecillo, Texcoco, Estado de México, con el objetivo de evaluar el efecto de la citrulina y de ácidos húmicos aplicados como tratamientos sobre la germinación, el vigor y la acumulación de biomasa en Cajanus cajan (L.) Millsp., bajo condiciones de invernadero. Se evaluaron cuatro tratamientos: testigo sin tratamiento, citrulina (1 g L-1), ácidos húmicos (1 ml L-1), y la combinación de citrulina + ácidos húmicos, con un diseño completamente al azar. Las variables germinativas que fueron evaluadas como el número de semillas germinadas, porcentaje de germinación, tiempo medio de germinación, tasa media de germinación, índice de incertidumbre de la germinación e índice de sincronía de la germinación no mostraron diferencias significativas entre tratamientos, lo que indica que la semilla contaba con alta viabilidad. A los 120 días después de la siembra se observaron diferencias significativas en la acumulación de materia seca en hojas, siendo mayores en los tratamientos con citrulina y citrulina + ácidos húmicos. El índice de esbeltez no tuvo diferencias entre tratamientos; sin embargo, el índice de vigor de la planta fue superior en la combinación de citrulina + ácidos húmicos con respecto al testigo. Los resultados indican que, aunque los tratamientos pregerminativos no influyeron en la germinación, la citrulina favoreció la acumulación de la biomasa foliar y en combinación con ácidos húmicos, promovió un mayor vigor de las plantas.
bioestimulante, forraje, germoplasma, viabilidad.
El frijol de árbol Cajanus cajan (L.) Millsp., es una leguminosa arbustiva con usos diversos en sistemas agrícolas y alimentarios, valorada por su tolerancia a condiciones semiáridas y por su potencial como cultivo multipropósito (grano, forraje y abono verde), con una producción de biomasa de hasta 24 t ha-1. En la literatura se describe a Cajanus cajan (L.) Millsp., como una opción agronómica relevante para zonas marginales debido a su adaptación edafoclimática y a su contribución de proteína del hasta el 22% en dietas humanas y de animales (Atuna et al., 2023; Bopape et al., 2023).
Además, este cultivo participa en la fijación biológica de nitrógeno de 80 a 230 kg ha-1 lo que mejora la fertilidad del suelo y contribuye a la sostenibilidad de los sistemas de cultivo mediante la reducción del uso de fertilizantes nitrogenados sintéticos (Bopape et al., 2023).
La germinación y el vigor de las plántulas son factores críticos del establecimiento y rendimiento final de los cultivos, la velocidad de implantación, uniformidad de emergencia y capacidad de tolerar estrés abiótico en la etapa inicial influyen de forma directa en la productividad (Reed et al., 2022). En muchas leguminosas la dormancia por impermeabilidad de la testa de la semilla limita el proceso de la imbibición, con la consiguiente disminución en la velocidad y sincronía de la germinación.
En algunas especies vegetales la estructura y composición del tegumento de la semilla causa impermeabilidad; sin embargo, existen métodos de campo y laboratorio que aceleran la emergencia y germinación, entre ellos existen la escarificación mecánica, química, tratamientos térmicos u osmóticos y el uso de bioestimulantes (Wen et al., 2024).
Entre los bioestimulantes, citrulina, se ha descrito como un aminoácido no proteico, que interviene en el metabolismo del nitrógeno, en funciones osmóticas y en la regulación de tipo redox, además de participar en rutas de reparación y transporte de nitrógeno hacia tejidos en crecimiento en Cucurbitaceae (Joshi y Fernie, 2017; Song et al., 2020).
Estudios fisiológicos y de transporte detectaron la presencia de citrulina en savia y tejidos jóvenes, lo que sugiere su papel en la movilización de compuestos nitrogenados durante la germinación y el crecimiento temprano Juglans regia L. (Mapelli et al., 2001; Song et al., 2020).
Por otra parte, los ácidos húmicos obtenidos de la materia orgánica tienen efectos promotores sobre la fisiología de las raíces, absorción de nutrientes y actividad enzimática relacionada con la protección antioxidante de semillas y plántulas, trabajos experimentales recientes muestran aumento en índices de germinación y en vigor de plántulas después de aplicaciones de ácidos húmicos en diferentes cultivos y condiciones de estrés (Basahi, 2021; Yang et al., 2023).
Si bien existe evidencia que respalda el uso de citrulina y ácidos húmicos como promotores del establecimiento en diversas especies, como en cucurbitáceas y gramíneas el número de estudios dirigidos a leguminosas, y en particular a Cajanus cajan (L.) Millsp., permanece limitado.
Con base en lo anterior, para el presente estudio se propuso como objetivo evaluar el efecto de la aplicación de citrulina y de un ácido húmico comercial sobre los parámetros de germinación, uniformidad de emergencia y desarrollo inicial de plántulas de Cajanus cajan (L.) Millsp., bajo condiciones de invernadero.
La investigación se desarrolló en un invernadero del Centro de Capacitación e Innovación Tecnológica (CCIT) del Colegio de Postgraduados-Campus Montecillo, ubicado en Montecillo, Texcoco, Estado de México.
En el presente estudio las semillas utilizadas fueron cosechadas cinco meses antes de establecer la investigación y fueron obtenidas de plantas establecidas con anterioridad dentro del Campus y se sometieron a distintos tratamientos pregerminativos.
Se evaluaron tratamientos pregerminativos, T1= semilla sin pretratamiento, tratamiento C= 1 h de inmersión en 1 L de agua, adicionado con 1 g de citrulina en polvo (L-citrulina, Evolution ®), tratamiento Ah= 1 h de inmersión en 1 L de agua adicionado con 1 ml de ácidos húmicos Agrobeta® y tratamiento C+Ah= 1 h de inmersión en 1 L de agua adicionado con 1 g de citrulina + 1 ml de ácidos húmicos.
Posterior a la aplicación de los tratamientos en semilla se procedió con la siembra. Para ello, se utilizaron bolsas con calibre de 200 a 300 para vivero (27 cm x 27 cm), llenas con suelo proveniente de la parcela ‘Predio Nuevo’ con suelo de tipo (franco-arcillo-arenoso, que presenta un pH de 7.9 y un contenido de materia orgánica 2%), del mismo Campus Montecillo.
Dentro de cada bolsa se colocó una semilla a dos centímetros de profundidad y en total se asignaron 25 bolsas a cada tratamiento. Por último, se aplicó un riego a saturación para promover la germinación y se repitió cada tercer día hasta la conclusión del trabajo.
Durante el periodo de evaluación, se registró la temperatura dentro del invernadero con un registrador de datos modelo RC-5+ (Elitech Technologies, Milpitas, CA, USA).
La emergencia de las plántulas se monitoreó durante 30 días después de la siembra por la mañana entre las 8 y 9 am durante el transcurso de la evaluación. Con el objetivo de calcular la velocidad de emergencia (Maguire, 1962), número de semillas germinadas (nsg), porcentaje de germinación (pg), tiempo medio de germinación (tmg), tasa media de germinación (Tmg), índice de incertidumbre de la germinación (inc) e índice de sincronía de la germinación (sin) en la plataforma colocar aquí (Kim et al., 1987; Ranal y Santana, 2006; Martínez et al., 2010; ISTA, 2018).
Las plántulas se consideraron como emergidas una vez que se observó el gancho de la plúmula sobre la superficie del suelo e inició el proceso de autotrofismo fotosintético (Forcella et al., 2000).
El día 120 después de la siembra (DDS) se llevó a cabo un muestreo destructivo, en el que se seleccionaron al azar cinco plantas por tratamiento. En este muestreo se midió la altura de la planta (cm), número de hojas trifoliadas, diámetro del cuello de la raíz (mm).
Con esta información se calculó el índice de esbeltez (IE) mediante la siguiente ecuación:
Además, se determinó el índice de vigor de la planta (IVP) con ayuda de la ecuación propuesta por Kim et al. (1987):
Por otra parte, también se obtuvo la materia seca de los componentes morfológicos, raíz, tallo y hojas. La materia seca se obtuvo registrando el peso fresco (g) de cada componente en una balanza analítica Style, KMT® con un margen de error de ±0.1 g y ±0.01 g.
Las muestras se colocaron en bolsas de papel identificadas de acuerdo con el componente morfológico y se metieron en una estufa de secado por aire forzado a 55 °C por 72 h hasta alcanzar un peso constante, posterior a esto solo se realizó una diferencia del peso fresco con respecto al peso seco obtenido.
Para el análisis de varianza de los datos se consideró un diseño experimental completamente al azar con cinco repeticiones por tratamiento. La comparación de medias se hizo mediante la prueba de Tukey (p< 0.05). Los análisis estadísticos se hicieron con el software SigmaPlot 15 (Systat Software. San José, California, USA).
Los resultados (Cuadro 1) indican que ninguna de las variables germinativas presentó diferencias significativas (p> 0.05) entre tratamientos.
[i] Número de semillas germinadas (nsg); porcentaje de germinación (pg); tiempo medio de germinación (tmg); tasa media de germinación (Tmg); índice de incertidumbre de la germinación (inc) e índice de sincronía de la germinación (sin) en semillas de Cajanus cajan (L.) Millsp., sometidas a distintos tratamientos pregerminativos.
La falta de efecto de los tratamientos pregerminativos sobre la germinación podría explicarse por la elevada viabilidad inicial de la semilla que se utilizó cinco meses después de la cosecha y a causa de que las condiciones experimentales favorecieron la germinación, reduciendo así la ventana de respuesta a bioestimulantes aplicados en semilla, fenómeno similar al observado en otros estudios con germoplasma de alta calidad fisiológica en maíz y sorgo (Nicchio et al., 2013; Vendruscolo et al., 2014; Rodrigues et al., 2017).
En el análisis de crecimiento y de la acumulación de biomasa a 120 días después de la siembra (Cuadro 2), solo la proporción de materia seca en hojas (MS-h) presentó diferencias significativas entre tratamientos (p= 0.002). Los tratamientos con citrulina y la combinación citrulina + ácidos húmicos mostraron mayor acumulación de masa foliar con respecto al testigo. Lo anterior sugiere un efecto fisiológico de la citrulina sobre la partición de biomasa hacia hojas en Cajanus cajan (L.) Millsp.
[i] Altura de planta (A, cm); número de hojas (NH); diámetro del cuello de la raíz (DT, mm); materia seca en hojas (MS-h, %); materia seca en tallo (MS-t, %); materia seca en raíz (MS-r, %) en plantas de Cajanus cajan (L.) Millsp., obtenidas a partir de semilla sometida a distintos tratamientos pregerminativos 120 días después de la siembra. Los valores que se presentan son la media de cinco observaciones y su error estándar.
La citrulina actúa como osmolito compatible, quelante de especies reactivas de oxígeno y modulador del metabolismo de aminoácidos y otras rutas relacionadas con el nitrógeno, dichos mecanismos pueden incrementar la biomasa bajo condiciones limitadas de nitrógeno (Joshi y Fernie, 2017; Song et al., 2020).
Además, investigaciones recientes demuestran que el cebado con citrulina y la aplicación exógena de citrulina mejoran parámetros de crecimiento y tolerancia ante el estrés abiótico (Song et al., 2020; Farooq et al., 2025). Sin embargo, bajo condiciones no estresantes el efecto sobre la germinación suele ser reducido (Song et al., 2020; Farooq et al., 2025), lo que concuerda con los resultados observados en esta investigación.
En los efectos del ácido húmico, se ha demostrado que su eficacia depende de la fuente, la estructura molecular, dosis y condiciones del cultivo. Además, los efectos positivos en el crecimiento, biomasa, arquitectura radicular y eficiencia de uso de nutrientes tienden a manifestarse en el desarrollo de la plántula más que en la germinación de semillas con alta viabilidad (Nunes et al., 2019; Nardi et al., 2021; Yang et al., 2023; Vitti et al., 2024).
Trabajos recientes demuestran que algunas fracciones de ácidos húmicos regulan la actividad de la H+-ATPasa de la membrana plasmática, la señalización por Ca2+ y la activación de la quinasa TOR (objetivo de la rapamicina), sustancias que estimulan el crecimiento inicial de la raíz (Canellas et al., 2022; Nabi et al., 2025; Santos et al., 2025).
Tales mecanismos explican por qué, aun sin efecto sobre la germinación, la presencia de ácidos húmicos puede aumentar de forma indirecta el desarrollo de la plántula y la acumulación de biomasa observada en algunos de los tratamientos empleados en el presente estudio (Nardi et al., 2021; Yang et al., 2023).
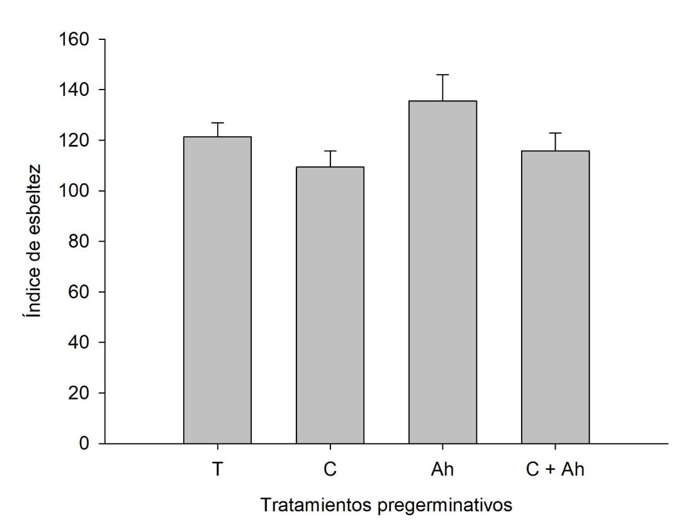
El índice de esbeltez no mostró diferencias significativas (p> 0.05) entre las plántulas obtenidas a partir de semillas con distintos tratamientos pregerminativos (Figura 1). Esto indica que la relación diámetro del cuello de la raíz/altura permaneció estable en todos los tratamientos evaluados.
En contraste, el índice de vigor de planta presentó diferencias significativas (p= 0.018). Las plantas originadas de semillas tratadas con la combinación C+Ah mostraron vigor superior con respecto al testigo (Figura 2).
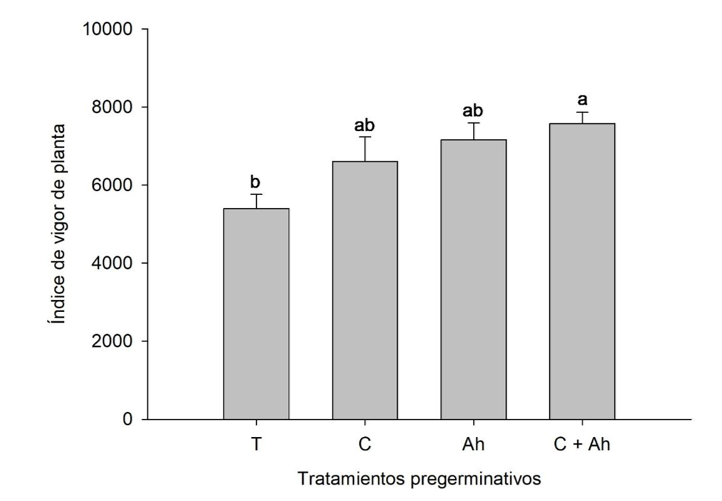
Este resultado sugiere una interacción sinérgica entre la citrulina y los ácidos húmicos que favorece atributos de vigor a mediano plazo, posiblemente a través de una mejoría en la protección antioxidante (por la citrulina) y estimulación de la adquisición de nutrientes y remodelado radicular (por los ácidos húmicos).
Observaciones recientes apoyan la hipótesis de sinergia entre aminoácidos bioestimulantes y sustancias húmicas al potenciar la respuesta vegetal bajo condiciones de estrés y al potenciar la eficiencia nutricional (Canellas et al., 2022; Nabi et al., 2025).
La aplicación de citrulina favoreció la acumulación de materia seca foliar y los ácidos húmicos resultan más relevantes en la fase de desarrollo de la plántula y en la remodelación radicular durante la germinación, aunque en combinación con la citrulina mostraron efectos positivos sobre el vigor de las plantas.
Lo anterior, ofrece la posibilidad de aplicar citrulina y ácidos húmicos como estrategia de bioestimulación, con mayor probabilidad de observar efectos positivos cuando la semilla posea baja viabilidad o las plántulas presenten estrés o limitaciones nutricionales.
Atuna, R. A.; Mensah, M. A. S.; Koomson, G.; Akabanda, F.; Dorvlo, S. Y. and Amagloh, F. K. 2023. Physico-functional and nutritional characteristics of germinated pigeon pea (Cajanus cajan) flour as a functional food ingredient. Reino Unido. Scientific Reports. 13(1):16627. https://doi.org/10.1038/s41598-023-43607-8.
Canellas, L. P.; Canellas, N. O. A.; da Silva, R. M.; Spaccini, R.; Mota, G. P. and Olivares, F. L. 2022. Biostimulants using humic substances and plant-growth-promoting bacteria: effects on cassava Manihot esculentus and okra Abelmoschus esculentus yield. Suiza. Agronomy. 13(1):80- https://doi.org/10.3390/agronomy13010080.
Farooq, U.; Ashraf, M. A.; Iqbal, M. and Rasheed, R. 2025. Effect of citrulline seed priming on growth, photosynthesis, redox equilibrium, secondary metabolic enzymes, metal sequestration and nutrient acquisition in sunflower Helianthus annuus L. under chromium toxicity. Suiza. BioMetals. 38(6):1991-2018. https://www.semanticscholar.org/paper/Effect-of-citrulline-seed-priming-on growth%2C-.
Nunes, R. O.; Domiciano, G. A.; Alves, W. S.; Melo, A. C. A.; Nogueira, F. C. S.; Canellas, L. P.; Olivares, F. L.; Zingali, R. B. and Soares, M. R. 2019. Evaluation of the effects of humic acids on maize root architecture by label-free proteomics analysis. Reino Unido. Scientific Reports. 9(1):12019. https://doi.org/10.1038/s41598-019-48509-2.
Santos, M. P.; Zupunski, M.; Monda, H.; Gralian, J.; James, A.; Grossmann, G.; Lamar, R. T. and Zandonadi, D. B. 2025. Humic acids modify root architecture in Arabidopsis through H+-ATPase-dependent target of rapamycin activation in concert with a2+ and ROS signaling. Italia. Chemical and Biological Technologies in Agriculture. 12(1):1-15. https://link.springer.com/article/10.1186/s40538-025-00764-4.
Torres, A.; Cova, A. y Varela, D. 2008. Efecto del proceso de germinación de granos de Cajanus cajan en la composición nutricional, ácidos grasos, antioxidantes y bioaccesibilidad. Chile. Revista Chilena de Nutrición. 45(5):323-332. https://www.scielo.cl/scielo.php?script=sci-arttext&pid=S0717-75182018000500323.
Vitti, A.; Coviello, L.; Nuzzaci, M.; Vinci, G.; Deligiannakis, Y.; Giannakopoulos, E.; Ronga, D.; Piccolo, A.; Scopa, A. and Drosos, M. 2024. Biostimulation of humic acids on Lepidium sativum L. regulated by their content of stable phenolic O⋅ radicals. Suiza. Chemical and Biological Technologies in Agriculture. 11(2):92. https://link.springer.com/article/10.1186/s40538-024-00613-w.