elocation-id: e4202
La calidad física de la semilla de cafeto es clave para producir plántulas, especialmente en condiciones edafoclimáticas no controladas, donde el endocarpio actúa como barrera que retrasa y hace irregular su emergencia. El objetivo de este trabajo fue evaluar el efecto del endocarpio sobre la cinética y uniformidad de emergencia de plántulas de seis genotipos de cafeto en condiciones de germinador en Oxapampa, Pasco, Perú, entre mayo y agosto de 2025. Se evaluaron seis genotipos de cafeto y dos condiciones (con y sin endocarpio). Se empleó un diseño completamente al azar con arreglo factorial 6 × 2, con dos bloques. Se evaluó porcentaje, tiempo, velocidad e índice de emergencia de plántulas. Los datos se analizaron con análisis de varianza, efectos simples y Tukey (p≤ 0.05). La interacción genotipo × endocarpio fue significativa para PE, TME, VME e ISE. La remoción del endocarpio incrementó el porcentaje y la velocidad de emergencia, y redujo el tiempo medio de emergencia en todos los genotipos. Obata Amarillo, Marsellesa, Cuscatleco y Catigua registraron los mayores porcentajes de emergencia (92.19-96.88%), mientras que Marsellesa presentó la emergencia más rápida (87.2 días) y la mayor velocidad de emergencia (1.29 plántulas día-1). El ISE mostró una respuesta diferencial según el genotipo. La investigación reveló que la eliminación del endocarpio mejora la cinética, al reducir el tiempo de emergencia y mejora la uniformidad de emergencia de plántulas.
genotipo, germinación, pergamino, plántula, semilla
El cafeto (Coffea arabica L.) constituye la principal especie cultivada en Oxapampa, distrito ubicado en la selva central del Perú (Acosta y Acosta, 2025). Siendo su cultivo, sustento de pequeños agricultores (Acosta et al., 2022). Sin embargo, se presenta un contexto de limitada información sobre la identidad varietal (Acosta et al., 2022) y de la cinética de emergencia específica de cada nanocuenca.
La renovación y establecimiento de nuevas plantaciones de cafeto enfrentan limitaciones en la obtención de plántulas de calidad, dado que la germinación es lenta y desigual, bajo un manejo convencional (Nápoles-Vinent et al., 2022), lo que prolonga el tiempo de permanencia en germinador, manejo cultural asociado y heterogeneidad de lotes de plántulas. Además, los cultivares comerciales de cafeto son autopolinizados y se propagan por semillas (Gebreselassie et al., 2010).
Las semillas de cafeto pueden germinar tras la cosecha, pero pierden viabilidad rápidamente (Coste, 1992). Además, el endocarpio actúa como una barrera física que limita la germinación, al dificultar la protrusión de la radícula, por ello, surge la necesidad de evaluar semillas sin endocarpio (Eira et al., 2006).
El análisis de semillas proporciona información fundamental y permite establecer estándares para determinar su calidad (Morejón y Díaz, 2023), y que el genotipo y la ausencia de endocarpio influyen en la emergencia y crecimiento de plántulas (Acosta et al., 2022). Mientras que su remoción tiende a acelerar la emergencia y mejora la uniformidad (Gebreselassie et al., 2010; Coa et al., 2014).
Ante estos antecedentes, el objetivo de esta investigación fue evaluar el efecto del endocarpio sobre la cinética y uniformidad de emergencia de plántulas de seis genotipos de cafeto (Coffea arabica L.) en condiciones de germinador en Oxapampa, Pasco, Perú, a fin de contribuir en la selección de genotipos con uniformidad de plántulas y generar conocimiento sobre la eficiencia en la emergencia de estos.
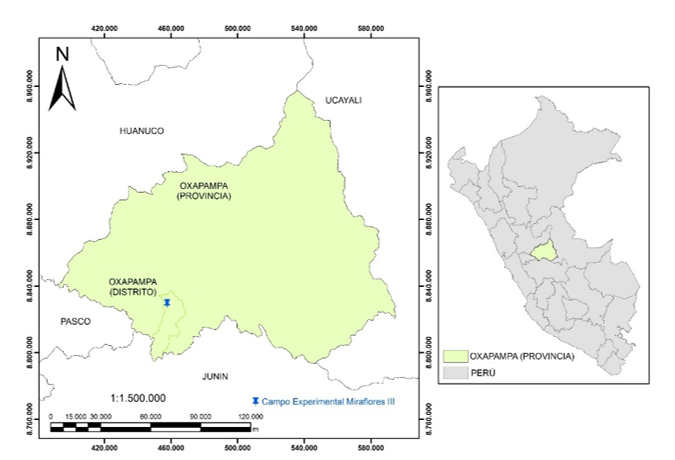
La investigación se realizó entre mayo y agosto de 2025, en el Campo Experimental Miraflores III de la Universidad Nacional Daniel Alcides Carrión, Oxapampa, Pasco, Perú, ubicado en la zona 18 L, a 45.7615o al este y 88.29303o al norte, a una altitud de 1 835 m) (Figura 1).
En el periodo de experimentación se tuvo una temperatura ambiental promedio de 17.37 °C, humedad relativa del 84.5% y precipitación pluvial acumulada de 312.3 mm (SENAMHI, 2025).
Las semillas de cafetos provinieron de parcelas de multiplicación de semillas de la clase no certificada del fundo Aroma de Montaña, ubicado en el distrito de Villa Rica.
Se empleó un diseño de bloques completamente al azar con arreglo factorial 6 × 2, para genotipo (Obata Rojo, Obata Amarillo, Cuscatleco, Castillo, Marsellesa y Catigua) y endocarpio [con endocarpio (CE) y sin endocarpio (SE)], distribuidos en 12 tratamientos. Con dos bloques y unidades experimentales (UE) compuestas por 32 semillas.
El sustrato utilizado fue arena de rio, previamente cernida mediante un tamiz con malla de 0.5 cm de lado y desinfectada (Julca et al., 2015; Caballero-Salas et al., 2021). El germinador tuvo dimensiones de 2.22 m de largo (4 filas de UE), 1.94 m de ancho (6 hileras de UE) y 0.3 m de profundidad (Valarezo et al., 2021), con bordes de madera. La extracción del endocarpio fue manual (Escobedo et al., 2025).
Para la selección de semillas, estas fueron colocadas en un vaso de precipitados de 500 ml con agua destilada y sometidas a separación por flotación y decantación, descartándose las impurezas y las semillas flotantes (Carrasco et al., 2025). El marco de siembra fue de 6 x 6 cm, y cada unidad experimental se mantuvo separada de la siguiente por 10 cm. Las semillas se enterraron a 1.5 cm (Coa et al., 2014). Se mantuvo un régimen de riego con una frecuencia de dos días y las unidades experimentales se mantuvieron bajo condiciones de vivero.
Se evaluaron el porcentaje de emergencia (ecuación 1), el tiempo medio de emergencia (ecuación 2), la velocidad media de emergencia (ecuación 3) y el índice de sincronía de emergencia (ecuación 4 y ecuación 5).
(ecuación 1, Morejón y Díaz, 2023);
(ecuación 2, Maqueira et al., 2023);
(ecuación 3, Vieira et al., 2016);
(ecuación 4, Ranal y García, 2006);
(ecuación 5, Ranal y García, 2006).
Donde: es el número de plántulas emergidas en la iésima toma de datos; es el día en la iésima toma de datos.
Los datos fueron recolectados a los 70, 75, 80, 85, 90 y 95 días después de la siembra (dds). Los valores en porcentaje fueron transformados con la función arcoseno (Martínez et al., 2012). Los datos fueron sometidos a un análisis de varianza (Anva) con un nivel de confianza del 95%, seguido del análisis de los efectos simples (nivel de confianza del 95%) y prueba de Tukey, medias con letras iguales no difieren estadísticamente (p≤ 0.05). Para ello, se utilizó el programa InfoStat, versión 2020e.
La emergencia de plántulas de los seis genotipos de cafeto estuvo influenciada por la presencia o ausencia del endocarpio, observándose que en semillas con endocarpio sembradas, la emergencia fue tardía, iniciándose a los 75 dds, lo que confirma su efecto retardante; en este grupo, Cuscatleco fue el más precoz y presentó el mayor número promedio de plántulas emergidas (24.5 ±0.5), alcanzando el valor más alto a los 95 dds, seguido por Castillo (12.5 ±2.5); Obata Amarillo (9 ±1), mientras que Marsellesa mostró la emergencia más baja (3.5 ±0.5) y tardía (Figura 2A).
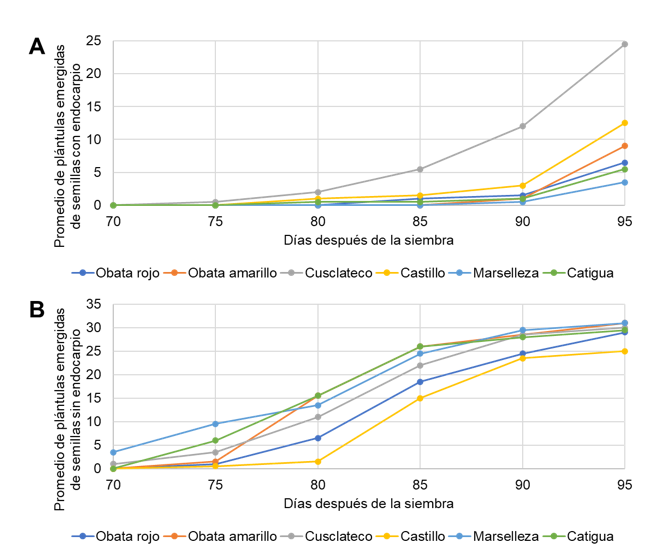
En contraste, en las semillas sin endocarpio la emergencia se inició más temprano y aumentó rápidamente en todos los genotipos, evidenciando que su ausencia favorece una emergencia más rápida y uniforme; en esta condición, Obata Amarillo y Marsellesa registraron el mayor número de plántulas emergidas, con un promedio de 31 plántulas al final del periodo de evaluación, mientras que Castillo presentó la menor emergencia, con 25 ±1 plántulas (Figura 2B).
Los resultados confirman diferencias genéticas tanto en la velocidad como en la capacidad de emergencia, así como una clara influencia del endocarpio en este proceso. Considerando el periodo de emergencia en esta investigación, Diaz et al. (2023) informan que la emergencia de plántulas puede presentarse dentro de un intervalo de 50 a 90 dds, a una altitud aproximada de 10 m.
Para el PE, el Anvaes, determinó que el factor genotipo presentó diferencias estadísticas altamente significativas (p< 0.01) tanto en la presencia y ausencia del endocarpio; asimismo, el factor endocarpio también mostró diferencias estadísticas altamente significativas (p< 0.01) entre los genotipos evaluados (Cuadro 1).
Para el TME, el Anvaes, determinó que el factor genotipo presentó diferencias estadísticas significativas (p< 0.05) para la presencia y ausencia del endocarpio; también, el factor endocarpio mostró diferencias estadísticas significativas (p< 0.05) para los genotipos evaluados (Cuadro 1).
Para la VME, el Anvaes, determinó que el factor genotipo presentó diferencias estadísticas altamente significativas (p< 0.01) tanto en la presencia y ausencia del endocarpio; asimismo, el factor endocarpio también mostró diferencias estadísticas altamente significativas (p< 0.01) entre los genotipos evaluados (Cuadro 1).
Para el ISE, el Anvaes determinó que el factor genotipo presentó diferencias estadísticas altamente significativas (p< 0.01) en la presencia de endocarpio, mientras que no se observaron diferencias estadísticas significativas (p> 0.05) en la ausencia del endocarpio (Cuadro 1).
Los hallazgos de González et al. (2015) resaltan que la emergencia de plántulas es directamente relacionada con el vigor de la semilla, el cual depende de la calidad de la semilla y eficiencia en los procesos metabólicos que ocurren durante la germinación. El vigor inicial es fundamental porque determina el crecimiento (Moreno-Peña et al., 2025) y desarrollo de plántulas entes del repique.
En presencia del endocarpio, el genotipo Cuscatleco registró el mayor PE (76.56%), superando significativamente al resto de genotipos, cuyos valores oscilaron entre 10.94 y 39.06%. En ausencia del endocarpio, Obata Amarillo, Marsellesa, Cuscatleco y Catigua conformaron el grupo estadísticamente superior, con porcentajes de emergencia entre 92.19 y 96.88%, sin diferencias significativas entre ellos. Obata Rojo presentó un comportamiento intermedio (90.63%), mientras que Castillo registró el menor PE (78.13%) (Cuadro 2).
El endocarpio constituye una barrera física que limita la imbibición e intercambio gaseoso, retrasando la activación de procesos metabólicos asociados a la germinación (Bewley et al., 2013). En concordancia, Gebreselassie et al. (2010); Carvalho y Nakagawa (2012) reportaron que la remoción del endocarpio favorece la emergencia de plántulas al reducir las restricciones físicas impuestas al embrión.
Este efecto posiblemente se debe a la mayor facilidad de imbibición, lo que favorece la reactivación del metabolismo celular y en consecuencia, el proceso de germinación y emergencia de plántula (González et al., 2015).
La prueba de comparación de medias de Tukey (α= 0.05) para los efectos simples de la interacción genotipo × condición del endocarpio mostró que, en presencia del endocarpio, no existieron diferencias significativas en el TME entre los genotipos evaluados, cuyos valores oscilaron entre 91.54 y 94.58 días.
En ausencia del endocarpio, se observaron diferencias significativas entre genotipos, donde Castillo presentó el mayor TME (90.44 días), sin diferir estadísticamente de Obata Rojo, Cuscatleco, Obata Amarillo y Catigua. Por su parte, Marsellesa registró el menor TME (87.2 días), diferenciándose significativamente de Castillo (Cuadro 3), destacando una emergencia más rápida.
Los elevados valores del TME observados reflejan un proceso de emergencia lento de las semillas de cafeto, lo que potencialmente puede estar asociado a caracteres genéticos asociados al vigor de la semilla (Filho, 2015). Sin embargo, la reducción del TME en ausencia del endocarpio evidencia el efecto restrictivo de esta estructura física sobre la emergencia. Estos resultados coinciden con Acosta et al. (2022), quienes reportaron una mejora en la emergencia de plántulas tras la remoción del endocarpio.
En presencia del endocarpio, Cuscatleco presentó la mayor VME (0.49 plántulas día-1), superando significativamente al resto de genotipos, cuyos valores variaron entre 0.04 y 0.2 plántulas día-1. En ausencia del endocarpio, Marsellesa, Catigua y Obata Amarillo conformaron el grupo estadísticamente superior, con velocidades de emergencia de 1.29, 1.2 y 1.16 plántulas día-1, respectivamente, sin diferencias significativas entre ellos. Cuscatleco y Obata Rojo mostraron valores intermedios (1.09 y 0.89 plántulas día-1), mientras que Castillo registro la menor VME (0.73 plántulas día-1) (Cuadro 4).
El factor endocarpio afectó significativamente el ISE de Obata Rojo (p< 0.05) y de forma altamente significativa el de Obata Amarillo, Marsellesa y Catigua (p< 0.01). No obstante, en presencia del endocarpio, la prueba de Tukey (α= 0.05) no evidenció diferencias significativas entre los genotipos evaluados, cuyos valores de ISE oscilaron entre 0.33 y 1.11 (Cuadro 5).
| Genotipo (CE) | ISE |
|---|---|
| Obata Amarillo | 0.33a |
| Marsellesa | 0.41a |
| Catigua | 1.04a |
| Obata Rojo | 1.11a |
La ausencia de diferencias significativas en el ISE entre genotipos indica una distribución temporal de emergencia similar bajo la condición con endocarpio. Asimismo, los valores obtenidos sugieren un comportamiento comparable en la uniformidad de emergencia de las plántulas, considerando que menores valores de ISE reflejan una mayor sincronía del proceso de emergencia (Narváez et al., 2022).
La remoción del endocarpio mejoró significativamente la emergencia de plántulas de cafeto, al incrementar el porcentaje y la velocidad de emergencia, y reducir el tiempo medio de emergencia.
La magnitud de esta respuesta dependió del genotipo, destacando Obata Amarillo, Marsellesa, Cuscatleco y Catigua por su alto desempeño.
En conjunto, los resultados evidencian que la eliminación del endocarpio favorece una emergencia más rápida y eficiente de las plántulas de cafeto.
Carrasco-Cruzado, A. Y.; Villegas-Herrera, N. A.; López-Medina, S. E.; Mostacero-León, J.; Rodríguez-Soto, J. C.; Gil-Rivero, A. E.; De La Cruz-Castillo, A. J. y Gonzales-Velasquez, C. L. Y. 2025. Influencia del ácido giberélico en la germinación de Physalis peruviana ‘aguaymanto’. Manglar. 22(1):61-66. https://doi.org/10.57188/manglar.2025.007.
Coa-Urbaez, M.; Mendez-Natera, J. R.; Silva-Acuña, R. y Mundarain-Padilla, S. 2014. Evaluación de métodos químicos y mecánicos para promover la germinación de semillas y producción de fosforitos en café (Coffea arábica) var. Catuaí Rojo. Idesia Arica. 32(1):43-53. https://doi.org/10.4067/S0718-34292014000100006.
Escobedo-Baylon, J. J.; Charcape-Méndez, A. S.; López-Medina, S. E.; Mostacero-León, J.; Rodríguez-Soto, J. C.; Gil-Rivero, A. E.; De La Cruz-Castillo, A. J. y Villena-Zapata, L. I. 2025. Influencia de ácido giberélico y tiempo de remojo sobre la germinación de semillas de Coffea arabica L. var. Catimor ‘café’. Manglar. 22(3):339-346. https://doi.org/10.57188/manglar.2025.034.
Moreno-Peña, L.; Hidalgo-Escobar, K.; Cevallos-Cevallos, J. M. and Sánchez-Timm, E. 2025. An effective disinfection protocol for contamination control in vitro establishment of Mortiño (Vaccinium floribundum Kunth) and identification of endogenous microbes. Scientia Agropecuaria. 16(3):375-384. https://doi.org/10.17268/sci.agropecu.2025.028.
Nápoles-Vinent, S.; Milanés-Riquene, S.; Hernández-Forte, I.; Morales-Mena, B. y Nápoles-Garcias, M. C. 2022. Los rizobios incrementan la germinación de las semillas de Coffea arabica y Coffea canephora. Segunda evidencia en Cuba. Agronomía Mesoamericana. 33(1):1-13. https://doi.org/10.15517/am.v33i1.45719.
Valarezo-Rivera, N. Y.; Quevedo-Guerrero, J. N.; Ajila-Gia, L. G.; García-Batista, R. M. y Chabla-Carrillo, J. E. 2021. Evaluación del porcentaje de germinación de cinco cultivares de café (Coffea arabica L.) empleando cuatro tratamientos en vivero. Revista Científica Agroecosistemas. 9(1):68-75. https://aes.ucf.edu.cu/index.php/aes/article/view/446.