elocation-id: elocation-id: e4176
El estudio de la producción de mango en Sinaloa 2000-2023, demuestra que el rendimiento no es un evento estocástico contemporáneo, sino un proceso dependiente de trayectoria definido por el estado fisiológico heredado del huerto. La evidencia indica que el cultivo llega a cada ciclo con una ‘memoria’ energética acumulada por su historia reciente de producción, la cual condiciona su capacidad de respuesta ante el clima, el manejo y los insumos. La modelación mediante algoritmos de ensamble permitió clasificar los regímenes productivos con una precisión del 77%-79%, alcanzando una robustez estadística de R2= 0.84 al identificar que la memoria fisiológica domina la jerarquía de predictores con un peso relativo del 53%. Este hallazgo permitió reinterpretar la variabilidad productiva. La caída del rendimiento no se explican por fallas estructurales o eventos climáticos extremos, sino por agotamiento fisiológico acumulado tras ciclos previos de alta extracción de biomasa. De igual forma, años con condiciones climáticas favorables pueden no traducirse en altos rendimientos si el árbol llega energéticamente comprometido. Se identificó un ‘punto dulce’ de inducción donde el rendimiento máximo (7.78 t ha-1) solo es viable bajo un Índice de estrés hídrico entre 0.54 y 0.61, fuera de este umbral, el árbol presenta una respuesta inelástica independientemente de su carga previa. A partir de esta lógica, se construyeron bioindicadores operativos que permiten anticipar la respuesta del cultivo y diferenciar años para intensificar la producción de aquellos donde conviene priorizar la recuperación fisiológica, optimizando la toma de decisiones intertemporales en sistemas agrícolas perennes.
cultivo perenne, econometría agrícola, fisiología económica, función de producción, mango.
La producción de mango en Sinaloa ocupa el primer lugar a nivel nacional, con un volumen anual cercano a 475 000 t, lo que representa una proporción significativa de la oferta mexicana del cultivo. A nivel internacional, México se ubica entre los principales productores y exportadores mundiales, destinando su producción principalmente a Estados Unidos de América, Europa, Japón y Canadá (SADER y SIAP, 2024; FAOSTAT, 2024). La relevancia económica del mango en el estado convierte a la variabilidad de su rendimiento en un problema no solo agronómico, sino también económico y estratégico para la planeación productiva y la gestión del riesgo agrícola (Antwi-Boasiako et al., 2024; Noordam, 2024; Ahmad et al., 2025).
En la literatura de economía agrícola, la función de producción ha sido tradicionalmente especificada bajo marcos estáticos (frecuentemente de tipo Cobb-Douglas o translog) en los que el rendimiento se modela como resultado contemporáneo de insumos productivos y condiciones climáticas del mismo ciclo (Cobb y Douglas, 1928; Christensen et al., 1973) e incorporando frecuentemente especificaciones estocásticas para capturar la incertidumbre inherente del proceso (Aigner et al., 1977; Just y Pope, 1978; Chambers y Quiggin, 2000). Estos enfoques han permitido estimar elasticidades, medir eficiencia técnica y evaluar productividad total de los factores (Coelli et al., 2005). Sin embargo, su estructura supone implícitamente independencia intertemporal entre ciclos productivos, trasladando al término de error cualquier efecto acumulativo proveniente de periodos anteriores.
Desde la agronomía, fenómenos como la alternancia productiva (biennial bearing) han sido ampliamente documentados en frutales, incluyendo especies tropicales y subtropicales como el mango. La literatura fisiológica ha mostrado que el rendimiento anual depende del balance entre la acumulación y utilización de carbohidratos no estructurales, así como de la competencia entre crecimiento vegetativo y reproductivo (Monselise y Goldschmidt, 1982; Goldschmidt, 2013; Vittal et al., 2023; Sharma et al., 2025). En mango, diversos estudios han identificado patrones de dependencia temporal asociados al agotamiento parcial de reservas tras años de alta carga frutal, generando ciclos alternantes de alta y baja producción (Vittal et al., 2023; Sharma et al., 2025). Estos mecanismos sugieren la existencia de un estado fisiológico heredado que influye en la respuesta productiva subsecuente (Liu et al., 2023; Sharma et al., 2025).
No obstante, pese a la evidencia agronómica sobre alternancia y dependencia de trayectoria, estos procesos rara vez han sido incorporados explícitamente dentro de la especificación econométrica de la función de producción a nivel agregado. La mayoría de los modelos empíricos continúan tratando la variabilidad interanual como resultado predominante de shocks climáticos exógenos o variaciones contemporáneas en insumos, sin integrar formalmente proxies operativos del estado biológico acumulado.
En este contexto, la investigación explora una especificación dinámica de la función de producción para cultivos perennes, incorporando variables observables de rendimiento rezagado como aproximaciones operativas del estado fisiológico acumulado del cultivo. Para ello, se emplea una arquitectura combinada de modelación econométrica y aprendizaje automático orientada a identificar patrones de dependencia temporal y heterogeneidad estructural en la producción de mango en Sinaloa durante el periodo 2000-2023 (Izzati-Ulinnuha et al., 2024).
El estudio se realizó en los municipios de Culiacán, Mazatlán, Rosario y Escuinapa del estado de Sinaloa, representativos del volumen estatal de mango (Mangifera indica L.), para el periodo 2000-2023 (24 ciclos).
Se construyó una base de datos tipo panel combinando: i) información agrícola del SIAP (superficie sembrada y cosechada, producción y rendimiento), diferenciando variedades (Kent, Keitt, Ataulfo, Tommy Atkins) y modalidad hídrica (SIAP, 2024a, 2024b); y ii) variables climáticas mensuales de NASA POWER con resolución espacial 0.5° × 0.5°, incluyendo temperatura del aire a 2 m (T2M-max, T2M-min, rango térmico), precipitación (PRECTOTCORR), radiación solar (ALLSKY-SFC-SW-DWN), humedad relativa (RH2M), velocidad del viento (WS2M, WS10M) y humedad del suelo superficial y radicular (GWETTOP, GWETROOT).
Para modelar dependencia temporal en cultivo perenne se incorporaron rezagos de rendimiento. El rezago simple se definió como:
y el promedio móvil trianual como:
.
Donde: es el rendimiento del municipio-variedad en el año .
La variable objetivo se discretizó por cuantiles (q= 3):
, reduciendo ruido estocástico y enfatizando regímenes productivos.
Los valores faltantes se imputaron con la mediana. Las variables categóricas (municipio, variedad, ciclo) se transformaron mediante Label Encoding.
Para reducir colinealidad climática se aplicó: i) información mutua (MI) para detectar dependencia no lineal con ; y ii) eliminación recursiva de características (RFE) con LightGBM y validación cruzada estratificada (k= 3), seleccionando predictores con mayor ganancia de información.
Las variables continuas con asimetría fueron normalizadas mediante transformación Yeo-Johnson:
.
Se implementó un Stacking Classifier de dos niveles. Nivel 1: LightGBM, XGBoost y CatBoost como modelos base de gradient boosting. Nivel 2: regresión logística como meta-clasificador, integrando probabilidades predichas:
Donde: es la probabilidad estimada por cada modelo base y la función logística.
La arquitectura de ensamble permitió evaluar la ganancia predictiva incremental frente a modelos individuales y al promedio histórico, capturando interacciones no lineales y posibles efectos de umbral entre variables climáticas y estructurales del sistema productivo. Este enfoque se vincula con aplicaciones recientes de aprendizaje profundo en mango, donde modelos LSTM han sido utilizados para pronosticar rendimiento a partir de series históricas de clima, superficie cultivada y producción previa (Izzati-Ulinnuha et al., 2024).
Se utilizó validación cruzada estratificada (k= 5). El desempeño se evaluó mediante exactitud, precision, recall y F1 ponderado:
.
Como referencia se estimó un modelo base de promedio histórico (Zero Rule), cuantificando la ganancia predictiva neta. La interpretabilidad se abordó mediante valores SHAP:
Identificando los factores climáticos y de memoria con mayor contribución marginal al rendimiento.
Con el objetivo de capturar la mecánica de la alternancia desde una perspectiva biofísica, se desarrollaron métricas de segundo orden que evalúan la interacción entre el estado interno del sistema y las señales ambientales. Se definió el índice de estrés hídrico en inducción (IEHI) para el trimestre crítico octubre-diciembre como:
Donde: GWETROOT representa la fracción de humedad en la zona radicular para el municipio i en el mes m.
Para cuantificar la capacidad de respuesta del sistema ante estímulos climáticos, se introdujo el concepto de fricción bioclimática (Φ), calculada a partir de la anomalía de rendimiento respecto a su memoria energética:
donde: Yi, t-1 es el índice de memoria energética (IME). Esta métrica permitió identificar la ‘inelastividad’ del cultivo; es decir, la incapacidad de la señal climática (IEHI) para desplazar el rendimiento cuando existe un agotamiento de reservas.
El análisis de umbrales se realizó mediante funciones de suavizado LOWESS y densidades de núcleo (KDE), permitiendo localizar el punto de saturación hídrica donde la respuesta fisiológica se vuelve decreciente. Finalmente, se aplicó una descomposición de importancia mediante valores SHAP, formalizados como:
.
Este procedimiento permitió validar la jerarquía de los predictores, confirmando el peso específico de la memoria energética frente a las variables de flujo ambiental en la determinación del régimen productivo.
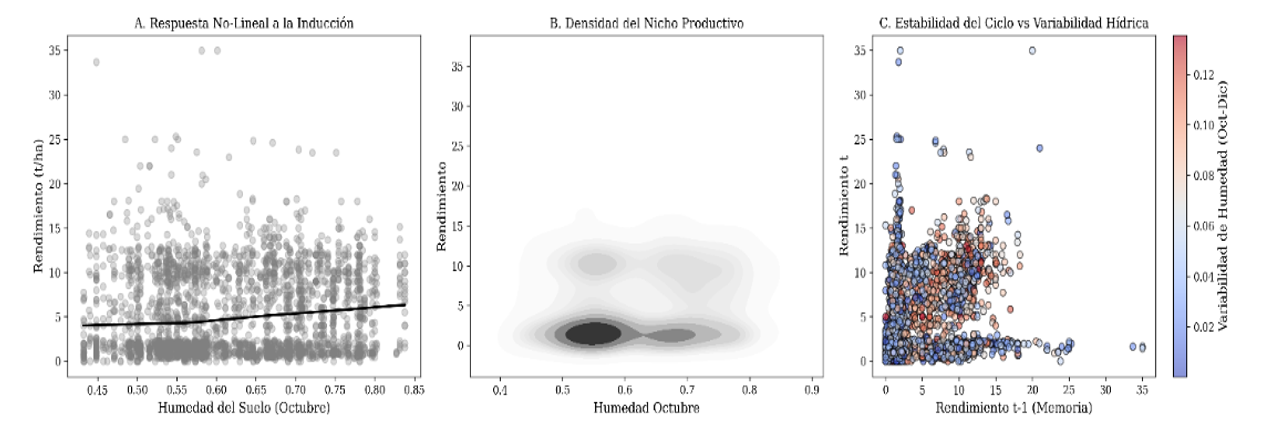
La necesidad de estos indicadores se fundamenta en la naturaleza no lineal y estocástica de la respuesta del cultivo. Como se ilustra en la Figura 1, la relación entre la humedad del suelo y el rendimiento (panel A) exhibe una dispersión que impide diagnósticos mediante regresiones lineales simples. La densidad del nicho productivo (panel B) revela núcleos de concentración asociados a regímenes on/off, mientras que la interacción entre la memoria y la variabilidad hídrica (panel C) confirma que los rendimientos superiores requieren una estabilidad específica en la señal ambiental.
El modelo Stacking exhibió una robustez estadística sobresaliente, alcanzando un coeficiente de determinación (R2) de 0.849. Este valor indica que el modelo logra explicar el 84.9% de la variabilidad total de los rendimientos de mango en los municipios analizados, dejando únicamente un 15.1% asociado al ruido estocástico o a factores no observados. En el conjunto de prueba (n= 806), la exactitud de clasificación fue de 93.67%, lo que evidencia que la combinación entre la memoria fisiológica y los umbrales climáticos captura de manera consistente la dinámica central de la función de producción perenne. Las métricas de bondad de ajuste y desempeño del modelo de ensamble se presentan en el Cuadro 1.
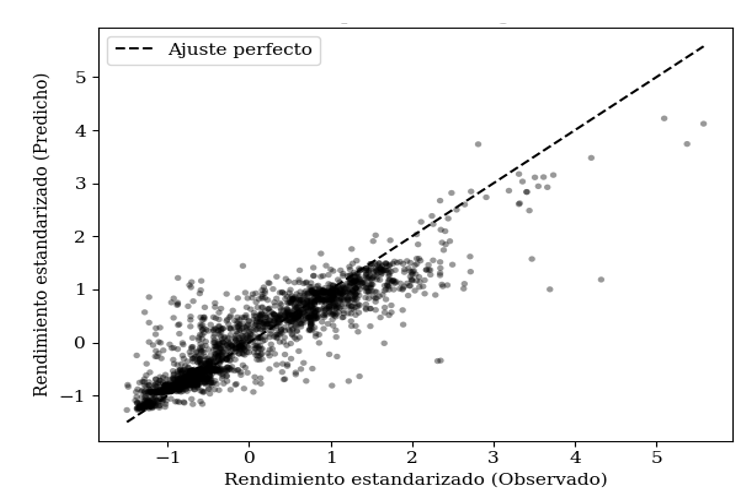
La descomposición de la varianza explicada confirma que la memoria fisiológica (IME) no constituye únicamente un predictor adicional, sino el eje central del sistema, con una contribución del 53.1% sobre el valor de Shapley. Esto implica que más de la mitad del poder explicativo del modelo (R2= 0.849) depende directamente de la carga fisiológica heredada del ciclo previo. La consistencia general entre los valores observados y predichos se presenta en la Figura 2, lo que respalda la capacidad del modelo para capturar la dinámica del rendimiento.
El resto de la varianza explicada se distribuye principalmente entre la ventana de inducción (IEHI), con una participación de 23.4% y la etapa de Amarre (IHA), con 18.5%. Estos resultados sugieren que las condiciones climáticas poseen un efecto relevante, aunque subordinado a la disponibilidad energética acumulada por el árbol.
En términos fisiológicos, el elevado R2 obtenido valida que la alternancia productiva, pese a su complejidad aparente, presenta una estructura altamente predecible cuando el análisis incorpora la memoria energética del cultivo. De esta manera, el clima no actúa como un determinante aislado de la producción, sino como un modulador cuya influencia se encuentra condicionada por los límites fisiológicos previamente establecidos por el árbol.
La interacción entre la memoria energética y la señal hídrica permite localizar el nicho productivo donde se maximiza la eficiencia del cultivo. Como se observa en la Figura 3, el rendimiento máximo esperado (7.78 t ha-1) se localiza exclusivamente en la intersección del cuartil superior de memoria (IME> 1.623) y el tercer cuartil de estrés hídrico de inducción (IEHI entre 0.545 y 0.616).
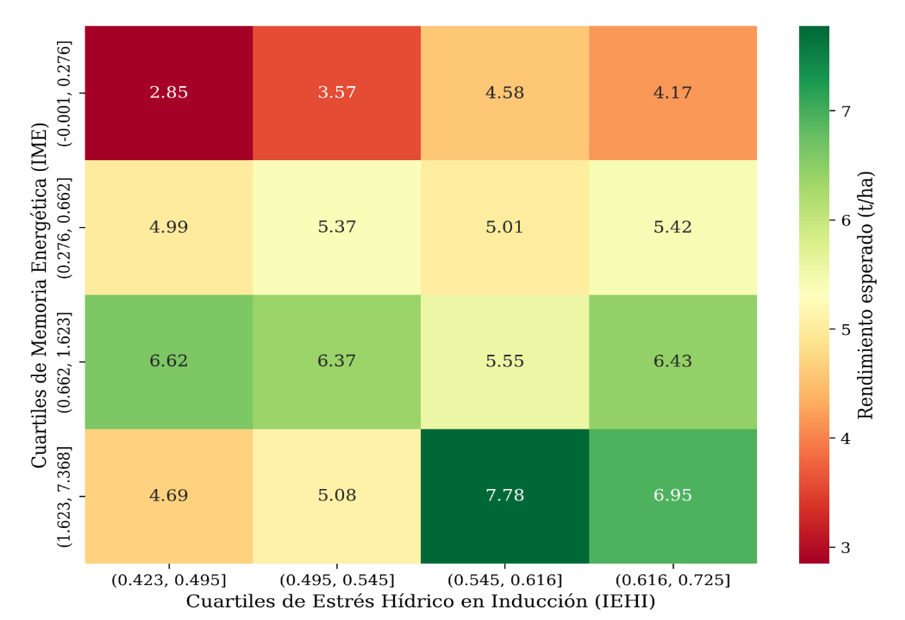
Este resultado es fundamental, ya que demuestra que incluso con reservas energéticas óptimas, el rendimiento experimenta una caída hacia las 6.95 t ha-1 cuando la humedad radicular supera el umbral de 0.616, confirmando la hipótesis de la inhibición vegetativa. Asimismo, en estados de baja memoria (cuartil superior del gráfico), el sistema muestra una rigidez estructural donde el rendimiento no logra superar las 4.58 t ha-1, independientemente de la optimización del estímulo hídrico.
Bajo un escenario de precipitación elevada en febrero (150 mm; PRECTOTCORR-Mes-2), el modelo proyectó una probabilidad de 87.47% para rendimiento alto, 11.49% para medio y 1.03% para bajo, cuantificando la sensibilidad positiva del cultivo a disponibilidad hídrica en etapa crítica de floración/cuajado.
Los resultados cuestionan la especificación estática tradicional , que supone independencia intertemporal. En mango, el rendimiento no depende sólo del capital estructural y del clima contemporáneo , sino de un estado fisiológico heredado. La dominancia empírica de y la genética confirma que el sistema posee memoria.
Se propone una función de producción dependiente de trayectoria:
onde: es el estado energético heredado. Dado que es inobservable, los rezagos productivos actúan como proxy:
.
Así, un año de alta producción puede generar deuda energética que reduce la elasticidad productiva en . Parte de lo atribuido a ‘ruido’ corresponde en realidad a estructura intertemporal no modelada.
El análisis SHAP muestra que el clima no opera como insumo lineal continuo, sino como señal que activa procesos en ventanas fenológicas críticas (Liu et al., 2023; Antwi-Boasiako et al., 2024; Ahmad et al., 2025). La presencia de umbrales (precipitación en febrero; amplitud térmica en noviembre) implica que:
sino que depende del estado energético:
La respuesta climática es condicional y asimétrica: con , el cultivo muestra rigidez aun bajo clima favorable; con reservas restauradas, maximiza la conversión de energía ambiental. Por tanto, la decisión óptima de inversión debe ponderarse por un índice de memoria del cultivo , no sólo por pronósticos meteorológicos.
Esta condicionalidad se observa nítidamente en el índice de estrés hídrico en inducción (IEHI). Los resultados demuestran que la señal climática solo es efectiva dentro de un umbral de humedad radicular de 0.54 a 0.61 durante el trimestre octubre-diciembre. Fuera de este rango, la elasticidad del rendimiento se vuelve nula, confirmando que el exceso de humedad actúa como un inhibidor de la señalización del florígeno, manteniendo al árbol en un estado vegetativo inelástico a pesar de contar con reservas energéticas (Liu et al., 2023; Antwi-Boasiako et al., 2024; Ahmad et al., 2025).
La evidencia de persistencia en estados de bajo rendimiento sugiere histéresis productiva, un fenómeno donde el estado actual del sistema depende fuertemente de su trayectoria histórica (Blanchard y Summers, 1986). El sistema no converge necesariamente al equilibrio determinado por el clima promedio, sino que puede quedar atrapado en déficits energéticos si no hay intervención agronómica, un comportamiento consistente con los balances metabólicos descritos en la literatura fundamental de fisiología vegetal (Taiz y Zeiger, 2010).
La dinámica del estado puede representarse como:
Donde: α es la tasa de agotamiento por extracción de fruto y β la tasa de recuperación fotosintética. Cuando α Qt-1> β Wt-1, emerge un déficit crónico. El modelo de ML identifica estos estados latentes y ajusta predicciones sin asumir reversión automática a la media (Vittal et al., 2023; Sharma et al., 2025).
La robustez de esta interpretación queda validada por el desempeño del modelo de ensamble, el cual alcanzó un R2= 0.849. Este elevado coeficiente de determinación confirma que la variabilidad observada no es ruido estocástico (εt), sino una estructura determinística donde la memoria fisiológica (IME) explica el 53.1% de la varianza.
El modelo detecta con precisión las ‘trampas de productividad’ al identificar que, cuando el IME es bajo, el sistema entra en una fase de latencia obligatoria para la restauración de almidones, donde la sensibilidad al clima disminuye drásticamente, validando empíricamente la dependencia de trayectoria (path dependence) del cultivo. El modelo de ML identifica estos estados latentes y ajusta predicciones sin asumir reversión automática a la media.
La determinación de la función de producción en sistemas perennes trasciende el análisis de variables exógenas contemporáneas, sugiriendo una dependencia de trayectoria donde el balance energético acumulado dicta la capacidad de respuesta metabólica del cultivo.
Esta dinámica interna se manifiesta en la sensibilidad del fruto ante manejos técnicos, observándose que la regulación mineral de la tasa respiratoria mediante calcio, la gestión hormonal de la maduración por control de etileno, la resiliencia de los tejidos ante estresores físicos extremos y la eficiencia fotosintética de nuevos materiales genéticos o variedades regionales específicas como el Ataulfo (Infante et al., 2011), operan bajo una estructura de homeostasis biológica preexistente que potencia o limita la eficacia de las intervenciones postcosecha y los procesos cinéticos de transformación agroindustrial (Ocampo, 2006).
En consecuencia, la viabilidad comercial, el valor nutricional o farmacológico (Wall-Medrano et al., 2015; Masud, 2016) y el rendimiento final no son eventos estocásticos, sino el resultado de una programación fisiológica condicionada por los ciclos de extracción de biomasa previos (Romero-Gomezcaña et al., 2006; Osuna-García et al., 2007; Vargas-Ortiz et al., 2013; Piedragil-Ocampo, 2018).
La evidencia obtenida sugirió que la variabilidad productiva del mango en Sinaloa no puede interpretarse únicamente como una respuesta contemporánea a las condiciones climáticas del ciclo agrícola en curso. La importancia relativa observada en los rezagos productivos y en los indicadores asociados al estado hídrico de inducción indica que el rendimiento incorpora componentes acumulativos vinculados con la dinámica interna del cultivo.
En términos funcionales, esto implica que la producción anual refleja simultáneamente procesos de asignación de biomasa presentes y efectos fisiológicos heredados de ciclos previos.
La interacción entre el índice de memoria energética (IME) y el índice de estrés hídrico en inducción (IEHI) muestra que la respuesta del sistema no es homogénea frente a la señal ambiental. Aun bajo condiciones hídricas favorables, los rendimientos elevados sólo se observaron cuando el cultivo mantenía una condición fisiológica previa compatible con una alta capacidad de respuesta reproductiva.
De manera inversa, estados de baja memoria limitaron la expresión productiva incluso en escenarios climáticos relativamente favorables. Este comportamiento sugiere que la elasticidad del rendimiento respecto al clima depende del estado biológico acumulado del huerto y no exclusivamente de la intensidad del estímulo meteorológico.
En este contexto, la humedad radicular durante la etapa de inducción floral adquiere relevancia no por su magnitud aislada, sino por su interacción con la carga fisiológica heredada del sistema. Los resultados indican la existencia de rangos específicos de humedad asociados con mayores niveles de rendimiento esperado, mientras que condiciones de saturación hídrica tendieron a reducir la respuesta productiva aun en estados de alta disponibilidad energética.
Ello es consistente con la hipótesis de que un exceso de humedad durante la inducción favorece actividad vegetativa en detrimento de la diferenciación floral, alterando el balance entre crecimiento y reproducción.
Por otra parte, la persistencia observada entre rendimientos rezagados y contemporáneos aporta evidencia compatible con procesos de alternancia productiva en escala regional. La permanencia de trayectorias de alta y baja producción entre ciclos consecutivos sugiere que el cultivo presenta mecanismos de recuperación fisiológica que operan más allá de un único periodo agrícola.
Desde una perspectiva económica, esto implica que parte de la variabilidad interanual tradicionalmente atribuida a shocks exógenos podría corresponder a restricciones biológicas acumulativas no incorporadas explícitamente dentro de las especificaciones agrícolas convencionales.
En conjunto, la información generada respalda una interpretación dinámica de la función de producción en cultivos perennes, donde el rendimiento depende de la interacción entre memoria fisiológica, señales ambientales y condiciones estructurales del sistema productivo. Bajo esta lógica, el clima actúa como un modulador de procesos fisiológicos preexistentes y no como un determinante independiente del desempeño agrícola (Izzati-Ulinnuha et al., 2024; Noordam, 2024).
Los resultados obtenidos muestran que el rendimiento del mango en Sinaloa durante el periodo 2000-2023 presenta un comportamiento dinámico y dependiente de trayectoria. La variabilidad productiva no se explica únicamente por las condiciones climáticas del ciclo actual, sino por la interacción entre clima, antecedentes productivos y características estructurales del cultivo, como el municipio y la variedad. En este sentido, la incorporación de variables rezagadas permitió mejorar la interpretación del desempeño agrícola y evidenció que la información histórica contiene elementos relevantes para explicar la respuesta productiva entre ciclos consecutivos.
La evidencia también indica que variables asociadas con humedad radicular, radiación solar, amplitud térmica y temperatura máxima tuvieron mayor relevancia que indicadores climáticos agregados convencionales, especialmente al analizar ventanas fenológicas específicas. En conjunto, los hallazgos sugieren que la modelación de cultivos perennes puede fortalecerse mediante enfoques dinámicos que integren información climática, variables estructurales y antecedentes productivos, ya que el rendimiento del mango responde tanto a las condiciones ambientales contemporáneas como a procesos acumulativos observables en su trayectoria histórica.
Ahmad, M.; Shabbir, M.; Ali, H.; Hashmi, M. B. F.; Ahmed, M.; Ahmad, S. and Malik, A. 2025. Climate-induced changes in mango production: phenological impacts, pest threats, and mitigation approaches. In: Naqvi, S. A. H.; Ahmad, S. and Ahmed M. (Eds.), climate change and mango production. 773-802 pp. Springer. https://doi.org/10.1007/978-3-031-87035-4-30.
Antwi-Boasiako, A.; Amponsah, P.; Opoku, J. A.; Coulibaly, D. and Mintah, P. 2024. Increasing mango production efficiency under the fast-changing climate. In: Hasanuzzaman, M. and Nahar, K. (Eds.), abiotic stress in crop plants: ecophysiological responses and molecular approaches. IntechOpen. https://doi.org/10.5772/intechopen.112951.
Liu, X.; Xiao, Y.; Zi, J.; Yan, J.; Li, C.; Du, C.; Wan, J.; Wu, H.; Zheng, B.; Wang, S. and Liang, Q. 2023. Differential effects of low and high temperature stress on pollen germination and tube length of mango (Mangifera indica L.) genotypes. Scientific Reports. 13(1):611-614. https://doi.org/10.1038/s41598-023-27917-5.
Osuna-García, J. A.; Cáceres-Morales, I.; Montalvo-González, E.; Mata-Montes de Oca, M. y Tovar-Gómez, B. 2007. Efecto del 1-metilciclopropeno (1-MCP) y tratamiento hidrotérmico sobre la fisiología y calidad del mango ‘Keitt’. Revista Chapingo Serie Horticultura. 13(2):157-163. https://doi.org/10.5154/r.rchsh.2007.02.014.
Romero-Gomezcaña, N. R.; Saucedo-Veloz, C.; Sánchez-García, P.; Rodríguez-Alcázar, J.; González-Hernández, V. M.; Rodríguez-Mendoza, M. N. y Báez-Sañudo, R. 2006. Aplicación foliar de Ca(NO-3)2: fisiología y calidad de frutos de mango `Haden´. Terra Latinoamericana. 24(4):521-527. http://www.redalyc.org/articulo.oa?id=57324410.
Sharma, N.; Vittal, H.; Dubey, A. K.; Sharma, R. M.; Singh, S. K.; Sharma, N.; Singh, N.; Khandelwal, A.; Gupta, D. K.; Mishra, G. P.; Meena, M. C.; Pandey, R. and Singh, N. K. 2025. Physiological and molecular insights into alternate bearing in mango using next-generation sequencing approaches. Journal of Experimental Botany. 76(6):1585-1606. https://doi.org/10.1093/jxb/erae403.
Vargas-Ortiz, M. A.; De la Cruz-Medina, J.; Oliart-Ros, R. M.; Rebolledo-Martínez, A.; Ramírez, J. A. y García, H. S. 2013. Efecto de las altas presiones hidrostáticas sobre los cambios poscosecha de mango ‘Manila’ en madurez fisiológica. CienciaUAT. 8(1):52-63. https://doi.org/10.29059/cienciauat.v8i1.10.
Vittal, H.; Sharma, N.; Dubey, A. K.; Shivran, M.; Singh, S. K.; Meena, M. C.; Kumar, N.; Sharma, N.; Singh, N.; Pandey, R.; Bollinedi, H.; Singh, B. P. and Sharma, R. M. 2023. Rootstock-mediated carbohydrate metabolism, nutrient contents, and physiological modifications in regular and alternate mango (Mangifera indica L.) scion varieties. Plos One. 18(5):e0284910. https://doi.org/10.1371/journal.pone.0284910.
Wall-Medrano, A.; Olivas-Aguirre, F. J.; Velderrain-Rodríguez, G. R.; González-Aguilar, A.; de la Rosa, L. A.; López-Díaz, J. A. y Álvarez-Parrilla, E. 2015. El mango: aspectos agroindustriales, valor nutricional/funcional y efectos en la salud. Nutrición Hospitalaria. 31(1):67-75. https://doi.org/10.3305/nh.2015.31.1.7701.