elocation-id: elocation-id: e4150
Paclobutrazol (PBZ) es un retardante del crecimiento que, además de reducir la altura de las plantas, podría incrementar la densidad estomática y el área del poro. En esta investigación se evaluó el efecto de cinco concentraciones de PBZ en el número de estomas, área del poro estomático, altura de las plantas y apariencia visual de Chenopodium quinoa cv. Suyana y Tunkahuan. El experimento se realizó de julio a diciembre de 2024 en la Facultad de Estudios Superiores Iztacala, UNAM. La siembra se realizó en 50 macetas con 2.5 L de peat moss:agrolita (1:1). A los 25 días se realizó el aclareo y se aplicaron de manera foliar los tratamientos siguientes: 0, 25, 50, 100 y 200 mg L-1 de PBZ. Al número de estomas y área del poro se les aplicó análisis de varianza de un factor y pruebas de comparación de medias (Tukey, p≤ 0.05). Los resultados mostraron que las células epidérmicas de ambas superficies foliares tuvieron paredes anticlinales con contornos sinuosos y estomas de tipo anomocítico. ‘Suyana’ tuvo mayor altura (109.25 cm), más estomas mm-2 (98.4) y poros más grandes (21.28 µm2) que ‘Tunkahuan’. La aplicación de PBZ incrementó el número de estomas y la apertura del poro estomático a partir de 25 mg L-1 y fue más acentuado con 100 o 200 mg L-1. PBZ también redujo la altura de las plantas y las tornó más coloridas para un posible uso ornamental.
área del poro estomático, células epidérmicas, número de estomas, Suyana, Tunkahuan.
Chenopodium quinoa Willd. (Amaranthaceae Juss.) es originaria de la región andina, tiene hojas lanceoladas o romboidales y sus granos son ricos en proteínas, lípidos y carbohidratos, con valores que fluctúan de 9.1 a 15.7, 4 a 7.6 y de 48.5 a 69.8% respectivamente (Nowak et al., 2016; Martínez-Villaluenga et al., 2020). La altura de las plantas de quinoa fluctúa de 0.9 a 1.8 m, lo que sumado a la longitud de sus panojas (0.4 m) supera los 2 m. Esta condición dificulta la cosecha de los granos (Espitia et al., 2021).
Por otro lado, González et al. (2014); Hussain et al. (2022) mencionan que, especies de quinoa con hojas anfiestomáticas y poros amplios pueden tener mayor eficiencia para la fijación de CO2, como ocurre en Ch. quinoa ‘CICA-17’ o ‘Pichaman’. En estas, la densidad de estomas mm-2 en la superficie adaxial y abaxial va de 161.9 a 183.5 y de 217.5 a 233.9 respectivamente. En ‘Pichaman’ también se reporta que, la apertura del poro estomático oscila entre 14.5 y 15.4 µm2.
Al respecto, los retardantes de crecimiento se han utilizado para reducir la altura de las plantas y facilitar la cosecha o para incrementar el número de estomas y la apertura del poro estomático que favorezcan la fijación de CO2. Uno de estos retardantes es paclobutrazol (PBZ) (Rademacher, 2000). PBZ es un triazol que inhibe la biosíntesis de giberelinas al bloquear la acción de la enzima ent-kaureno oxidasa y evitar la oxidación de ent-kaureno en ácido ent-kaurenoico (Taiz y Zeiger 2010).
Así pues, PBZ no solo acorta la longitud de los entrenudos y hace a las plantas más compactas y llamativas, también modifica la densidad y apertura del poro estomático al incrementar la concentración de ácido abscísico en las células guarda (Waqas et al., 2017; Xia et al., 2018; Torres-Pio et al., 2021).
Por ejemplo, en Beta vulgaris, el número de estomas en las plantas control fue de 5.6 mm-2 y se incrementó a 350.1 por la aplicación de 500 mg L-1 de PBZ (Shevchuk et al., 2019). En Paeonia lactiflora, el área del poro se incrementa de 4.07 a 7.34 μm2 con 100 mg L-1 de PBZ, (Xia et al., 2018). Investigaciones relacionadas con la aplicación de PBZ como mejorador del aspecto visual y achaparramiento de las plantas, sin efecto en la floración, se han reportado en Lililum ‘Arcahon’, ‘Armandale’, ‘Tresor’ y ‘Litouwen’ entre otros (Torres-Pio et al., 2021; Rios-Florida et al., 2022; Velasco-Lara et al., 2024).
En estos cultivares ocurre disminución en la altura y su potencial de uso ornamental se incrementa. Sin embargo, en los cultivares de Lilium o en Ch. quinoa, no ha sido evaluado el efecto de PBZ en la anatomía o densidad de estomas, lo que podría ser relevante si se considera su relación con la fijación de CO2 y posible rendimiento del grano.
Por ello, el objetivo de esta investigación fue evaluar el efecto de cinco concentraciones de PBZ en la descripción, número de estomas, área del poro estomático, altura de las plantas y apariencia visual de Ch. quinoa ‘Suyana’ y ‘Tunkahuan’.
Las semillas de ‘Suyana’ y ‘Tunkahuan’ fueron cosechadas, en noviembre de 2023, en las parcelas experimentales del Instituto Nacional de Investigaciones Forestales, Agrícolas y Pecuarias (INIFAP). Para esta investigación, el cultivo se realizó en un invernadero con cubierta plástica, de julio a diciembre de 2024 en la Facultad de Estudios Superiores Iztacala, UNAM. La siembra se realizó en 50 macetas con 2.5 L de peat moss:agrolita (1:1) llevado a 100% de humedad aprovechable con 1.25 L de agua de la llave.
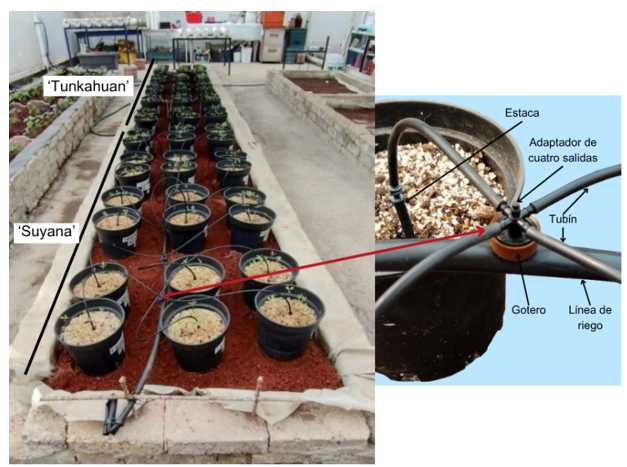
A los 25 días después de la siembra se realizó un aclareo dejando solo una planta por cada maceta. Las unidades experimentales quedaron conformadas por una maceta con 2.5 L de sustrato y una planta de ‘Suyana’ o ‘Tunkahuan’ que se colocaron en forma aleatoria en el interior del invernadero (Figura 1).
Desde este momento y hasta los 76 días después de la siembra, los martes y viernes de cada semana, entre las 10 y las 12 h, se aplicaron de manera foliar los tratamientos siguientes con cinco repeticiones: 0 (control), 25, 50, 100 y 200 mg L-1 de PBZ (2RS, 3RS)-1(4-clorofenil-4,4-dimetil-2(1H1,2,4-triazol-1-il)-pentan-3-ol, (Cultar® 23.42%, Syngenta, Switzerland).
La humedad se registró cada tercer día con un tensiómetro (Irrometer® Co, USA) y cuando esta tuvo valores de 56 cbars (equivalente a 80%) se restituyó con solución Steiner (1961) aplicada a las 8, 14 y 18 h mediante un sistema semiautomatizado con goteros de 4 L h-1 (Figura 1). El pH y la conductividad eléctrica de la solución nutritiva fueron de 6.2 y 2 dS m-1. Para evitar la acumulación de sales, cada 15 d se restauró la humedad con agua acidulada (pH, 6.1) y se monitorearon las plantas para prevenir deficiencias, enfermedades o plagas.
Se evaluó: anatomía de la epidermis: descripción, número de estomas y área del poro. En la parte media de cada planta se tomaron muestras de hojas que se fijaron en FAA (10% formaldehído, 5% ácido acético, 50% etanol absoluto, 35% agua destilada) y se realizaron raspados epidérmicos que se colocaron en portaobjetos para obtener preparaciones semipermanentes (Aguilar-Rodríguez, 1998).
Con estas preparaciones se realizó la descripción anatómica de las células epidérmicas y los estomas en la superficie adaxial y abaxial de los tratamientos control. Para evaluar la anatomía, número de estomas y área el del poro estomático se utilizó un microscopio óptico (Nikon, E200) acoplado a un analizador de imágenes (NIS-Elements, BR5.21.01, Nikon Instruments).
La altura se registró con flexómetro FH-5M (Truper®) tomando como referencia la superficie del sustrato y el ápice de cada planta. La apariencia visual se obtuvo al tomar fotografías con una cámara digital Nikon D3500. Las imágenes se procesaron con el software libre GIMP v. 3.0.4 (http://www.gimp.org.es/).
A los resultados se les corroboró distribución normal (Anderson Darling, p> 0.05) y varianzas homogéneas (Bartlett, p> 0.05) antes de ser procesados con análisis de varianza de un factor y pruebas de comparación de medias (Tukey, p≤ 0.05). Para el análisis se utilizó el Software SAS® 9.0 para Windows (SAS Institute Inc., 2013).
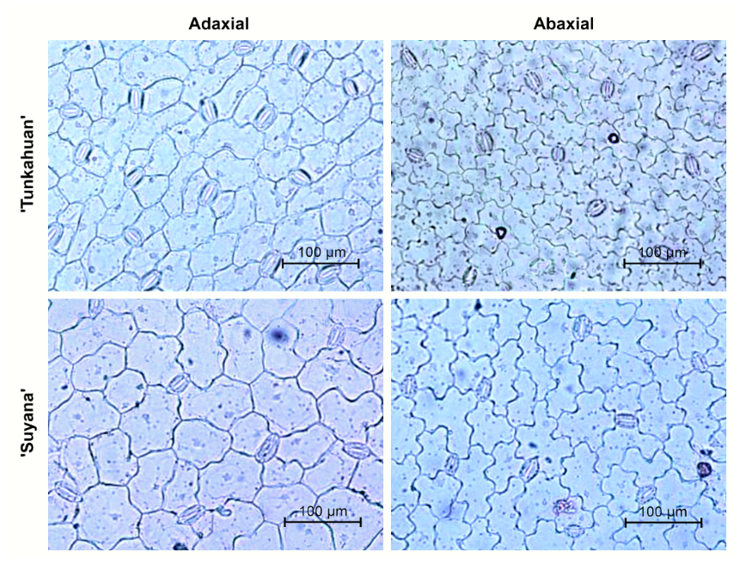
En vista superficial, las células de la epidermis adaxial de ‘Suyana’ y ‘Tunkahuan’ mostraron paredes anticlinales lisas, delgadas y de contorno ligeramente sinuoso a recto; en contraste, ondulaciones más profundas se mostraron en la epidermis abaxial. Ambos cultivares tienen hojas anfiestomáticas con estomas anomocíticos en ambas superficies, es decir, no existen células diferenciadas alrededor de las oclusivas (Figura 2).
Los estomas de tipo anomocítico en ambas superficies se presentan en distintas especies de Ch. (Gaafar, 2019; Buedo et al., 2024) y en cultivares; como ‘CICA-17’ y ‘Real’ (González et al., 2022), además de otras amarantáceas como Atriplex halimus y Aerva javanica (Tantawy et al., 2023). Sin embargo, para el género Chenopodium también se han descrito estomas de tipo anisocítico; es decir, que las células oclusivas están rodeadas por tres células epidérmicas, una de ellas más pequeña que las otras dos (Gaafar, 2019).
Desde el punto de vista taxonómico, no se observaron diferencias anatómicas cualitativas de la hoja que sean evidentes para distinguir a ‘Suyana’ de ‘Tunkahuan’, pero los caracteres cuantitativos si contribuyen para la separación de otros cultivares de Ch. quinoa.
Las ondulaciones de la pared anticlinal de las células epidérmicas abaxiales, presentes en ‘Suyana’ y ‘Tunkahuan’, pueden contribuir con la resistencia a sacudidas por depredadores o condiciones ambientales. De acuerdo con Vőfély et al. (2019), este carácter es frecuente en muchas dicotiledóneas y su función es mejorar la superficie de contacto entre células adyacentes para una mayor resistencia estructural frente a tensiones mecánicas de las hojas (Sapala et al., 2018; Panteris y Adamakis, 2022).
Ambos cultivares tienen hojas anfiestomáticas. Sin embargo, ‘Suyana’ tuvo mayor número de estomas en la parte adaxial y abaxial de la hoja (75.3 y 98.4) comparado con ‘Tunkahuan’ que tuvo 48.1 y 70.8 respectivamente. Estos números se incrementan por la aplicación de PBZ, siendo más notorios con los tratamientos de 100 o 200 mg L-1.
Respuesta similar se observó con el área del poro, ya que ´Suyana’ tuvo mayor área adaxial y abaxial (18.06 y 21.08 μm2) que ‘Tunkahuan’ con 12.79 y 15.89 en el haz y el envés de la hoja respectivamente. Misma que se incrementó por las dosis de PBZ aplicadas (Cuadro 1).
En ‘Suyana’, el número de estomas (98.4 mm2) estuvo dentro del intervalo que Rasouli et al. (2023); García-Parra et al. (2024) reportan para Chenopodium quinoa ‘Q20’ y ‘Titicaca’ con 85 y 153 estomas mm-2 en la superficie abaxial. En ‘Tunkahuan’ este número (70.8 mm2) estuvo por debajo de los tres cultivares, pero a partir de 25 mg L-1 de PBZ fue igual que ‘Q20’ y con 200 mg L-1, ligeramente por debajo de ‘Titicaca’, lo cual hace evidente que, en ‘Suyana’ y ‘Tunkahuan’ el número de estomas se incrementa por la aplicación de PBZ.
Es importante resaltar que, la mayor densidad de estomas en la parte abaxial es una respuesta de protección contra la desecación y ahorro de agua (Taiz y Zeiger, 2010). Con respecto al área del poro estomático, Waqas et al. (2017); Waqas et al. (2021) observaron que, en Ch. quinoa ‘2 Want’ y ‘Pichaman’, la apertura del poro fue de 10.78 y 15.36 µm2, por debajo de lo que aquí se reporta para ‘Suyana’ (21.28 µm2) o ‘Tunkahuan’ (15.89 µm2) sin PBZ.
Sin embargo, con 200 mg L-1 de PBZ, el área del poro se incrementa hasta 30.9 µm2, lo cual corrobora que, PBZ tiene un efecto que favorece la fisiología de los cultivos. El incremento en el número de estomas y apertura del poro favorecen la conductancia estomática, lo que facilita la captura de CO2 y mejorar la eficiencia fotosintética para un posible incremento en el rendimiento de grano (Gaafar, 2019; Xiong y Flexas, 2020).
La altura de las plantas fue mayor en ‘Suyana’ (109.25 cm) que en ‘Tunkahuan’ (61.58 cm). Además, en ‘Suyana’, la altura disminuyó de manera proporcional a la concentración de PBZ, mientras que en ‘Tunkahuan’ la disminución fue similar con cualquier concentración del retardante (Figura 3).
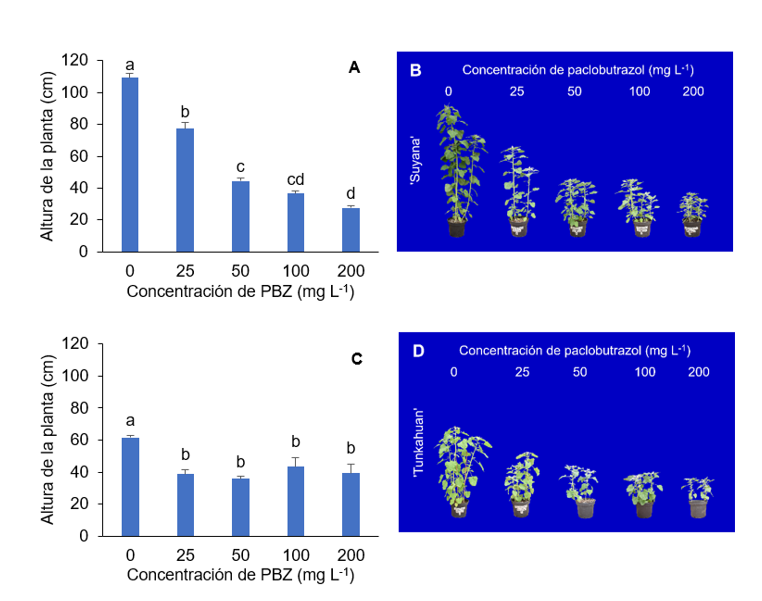
Ambos cultivares tuvieron una apariencia visual más llamativa confiriéndoles un uso potencial como plantas de ornato, además de la probada contribución de sus granos con la seguridad alimentaria (Romero-Benavides et al., 2023). El efecto mejorador que provoca PBZ en la apariencia visual de las plantas ha sido reportado por Torres-Pio et al. (2021); Rios-Florida et al. (2022) en Lilium ‘Arcachon’, ‘Armandale’ y ‘Tresor’.
En estos cultivares la altura disminuye mientras que el número de botones florales se mantiene o se incrementa, lo que les confiere un aspecto muy llamativo para su comercialización como flores de corte o plantas de maceta.
En Ch. quinoa y otras amarantáceas como Celosia y Amaranthus la concentración de pigmentos como betalaínas se incrementa por efecto de PBZ, entre 1.6 y 6 veces (Srinivasan, 2017; Xie et al., 2025), confiriéndole a las hojas colores más llamativos, no solo para un posible uso ornamental, sino también para la protección contra estrés ambiental por su capacidad antioxidante o como colorante natural por su concentración de betacianinas (Martínez et al., 2024).
Las hojas de ‘Suyana’ y ‘Tunkahuan’ son afiestomáticas con estomas de tipo anomocítico. En ambas superficies de la hoja, ‘Suyana’ tuvo mayor número de estomas con poros más grandes que ‘Tunkahuan’. Paclobutrazol incrementa el número de estomas y la apertura del poro a partir de 25 mg L-1, teniendo su límite con 100 mg L-1, es decir, concentraciones mayores ya no incrementarán la conductancia estomática para la posible fijación de CO2.
‘Suyana’ tuvo mayor porte que ‘Tunkahuan’ y con paclobutrazol su altura disminuyó de manera proporcional a las dosis aplicadas. ‘Tunkahuan’ es más sensible a paclobutrazol, basta con aplicar 25 mg L-1 para tener una reducción significativa en la altura de las plantas y facilitar las labores de cultivo. Además, por la intensidad de color que confiere paclobutrazol, ambos cultivares mejoran su aspecto visual para ser utilizadas como plantas ornamentales o como fuentes de colorantes vegetales.
A la Facultad de Estudios Superiores Iztacala por el financiamiento anual que aporta para la realización de proyectos en las unidades de investigación.
Buedo, S. E.; Mercado, M. I. y González, J. A. 2024. Caracterización fotosintética y anatomía foliar de Chenopodium album y Ch. hircinum (Chenopodiaceae) en un valle de altura del noroeste Argentino. Boletín de la Sociedad Argentina de Botánica. 59(1):13-25. https://doi.org/10.31055/1851.2372.v59.n1.42881.
García-Parra, M. A.; Amado-Rodríguez J. L. and Hernández-Criado, J. C. 2024. Photosynthetic capacity, phenology, yield and chemical composition of seeds of three cultivars of quinoa (Chenopodium quinoa Willd.). Revista Colombiana de Ciencias Hortícolas. 18(2):e17524. https://doi.org/10.17584/rcch.2024v18i2.17524.
González, J. A.; Mercado, M. I.; Martínez-Calsina, L.; Erazzú, L. E.; Buedo, S. E.; González, D. A. and Ponessa, G. I. 2022. Plant density effects on quinoa yield, leaf anatomy, ultrastructure and gas exchange. The Journal of Agricultural Science. 160(5):349-359. https://doi.org/10.1017/S0021859622000533.
González, J. A.; Ponessa, G. I.; Buedo, S.; Mercado, M. I. and Prado, F. E. 2014. Asimilación fotosintética máxima en variedades de quinoa (Chenopodium quinoa) de diferentes orígenes geográficos y su relación con la morfología foliar. Lilloa. 51(2):177-193. https://ri.conicet.gov.ar/handle/11336/12428.
Martinez, R. M.; Melo, C. P.; Pinto, I. C.; Mendes-Pierotti, S.; Vignoli, J. A.; Verri, W. A. and Casagrande, R. 2024. Betalains: a narrative review on pharmacological mechanisms supporting the nutraceutical potential towards health benefits. Foods. 13(23):3909. https://doi.org/10.3390/foods13233909.
Rasouli, F.; Kiani-Pouya, A.; Movahedi, A.; Wang, Y.; Li, L.; Yu, M.; Pourkheirandish, M.; Zhou, M.; Chen, Z.; Zhang, H. and Shabala, S. 2023. Guard cell transcriptome reveals membrane transport, stomatal development and cell wall modifications as key traits involved in salinity tolerance in halophytic Chenopodium quinoa. Plant and Cell Physiology. 64(2):204-220. https://doi.org/10.1093/pcp/pcac158.
Romero-Benavides, J. C.; Guaraca-Pino, E.; Duarte-Casar, R.; Rojas-Le-Fort, M. and Bailon-Moscoso, N. 2023. Chenopodium quinoa Willd. and Amaranthus hybridus L.: ancestral Andean food security and modern anticancer and antimicrobial activity. Pharmaceuticals. 16(12):1728. https://doi.org/10.3390/ph16121728.
Sapala, A.; Runions, A.; Routier-Kierzkowska, A. L.; Gupta, M. D.; Hong, L.; Hofhuis, H.; Verger, S.; Mosca, G.; Li, C. B.; Hay, A.; Hamant, O.; Roeder, A. H.; Tsiantis, M.; Prusinkiewicz, P. and Smith, R. S. 2018. Why plants make puzzle cells, and how their shape emerges. Elife. 27(7):e32794. https://doi.org/10.7554/eLife.32794.
Torres-Pio, K.; De la Cruz-Guzmán, G. H.; Arévalo-Galarza, M. D. L.; Aguilar-Rodríguez, S.; Grego-Valencia, D.; Arriaga-Frías, A. and Mandujano-Piña, M. 2021. Morphological and anatomical changes in Lilium cv. Arcachon in response to plant growth regulators. Horticulture, Environment, and Biotechnology. 62(3):325-335. https://doi.org/10.1007/s13580-020-00319-6.
Waqas, M.; Yaning, C.; Iqbal, H.; Shareef, M.; Rehman, H. and Bilal, H. M. 2021. Synergistic consequences of salinity and potassium deficiency in quinoa: Linking with stomatal patterning, ionic relations and oxidative metabolism. Plant Physiology and Biochemistry. 159:17-27. https://doi.org/10.1016/j.plaphy.2020.11.043.