elocation-id: elocation-id: e4204
Los valores de temperatura en los que ocurre la germinación de las semillas pueden servir como referencia para proponer sitios de siembra o establecimiento. En esta investigación se evaluó el efecto de ocho temperaturas en la germinación de Dahlia coccinea Lehm. y Dahlia campanulata Saar, P. D. Sørensen y Hjert. La hipótesis fue: como las especies de Dahlia estudiadas tienen distribución contrastante, se espera que, una de ellas muestre los mayores intervalos de temperaturas para la germinación de sus semillas. La colecta se realizó en la Reserva Ecológica Tlalpuente, Tlalpan, Ciudad de México en 2023. Las unidades experimentales fueron cajas Petri con dos discos de papel absorbente humedecidos con agua destilada y 25 semillas de D. coccinea o D. campanulata. Los tratamientos fueron las temperaturas de incubación (5, 10, 15, 20, 25, 30, 35 y 40 ±2 °C). Por 15 días se registró el número de semillas germinadas. D. coccinea tuvo la mayor germinación (93.6%) y velocidad (4 semillas día-1) a 25 °C, con temperaturas cardinales de 3.3, 24.1 y 35.3. Mientras que, en D. campanulata, el intervalo fue más amplio, ya que desde 10 hasta 25 °C su germinación promedio fue de 90% con 8 semillas día-1 y temperaturas cardinales de 2.3, 22.5 y 38.4 °C. Las semillas de D. campanulata fueron las que germinaron con un intervalo más amplio de temperaturas, por lo que esta especie tiene más posibilidades éxito para ser cultivada fuera de su hábitat natural.
Dahlia campanulata, Dahlia coccinea, temperaturas cardinales, velocidad de germinación.
El género Dahlia Cav. (Asteraceae Bercht. y J. Presl) cuenta con 41 especies, de las cuales 38 son endémicas de México, que también se le considera como su centro de origen y diversificación (Carrasco-Ortiz, 2019; Mejía-Muñoz et al., 2020).
Las plantas de Dahlia tienen entrenudos fistulosos, raíces tuberosas y cabezuelas con flores tubulares en el centro y liguladas en la periferia, con colores blancos, amarillos, naranjas, rojos o morados que les confieren singular belleza para ser utilizadas como plantas ornamentales (Carrasco-Ortiz, 2019; Mejía-Muñoz et al., 2020; Sánchez-Chávez et al., 2025).
Dahlia coccinea Lehm. y Dahlia campanulata Saar, P.D. Sørensen y Hjert. son dos especies que se propagan por semilla para comercializarse como plantas jardín o de maceta (Chaudhary et al., 2020; Dastvan et al., 2022). Por lo que, las investigaciones sobre el efecto de la temperatura en la germinación de estas especies resultan relevantes, ya que los resultados pueden ser utilizados para inferir sitios de establecimiento fuera de su hábitat natural (Singh et al., 2008; Ghío et al., 2021).
En este caso, a D. coccinea se le puede encontrar desde el norte de México hasta Guatemala en altitudes que van de 0 a 3 033 m y temperaturas que oscilan entre 3 y 30 °C, mientras que D. campanulata es endémica del estado de Oaxaca, se desarrolla en altitudes cercanas a 2 000 msnm y temperaturas que van de 8 a 15 °C (Garzón-Solis et al., 2009; Castro-Castro et al., 2012).
La temperatura disminuye conforme se incrementa la altitud de los sitios donde se desarrollan las especies y esto puede afectar de manera diferente a su germinación ante condiciones de estrés térmico (García-Diaz et al., 2025).
Entre otras, esta es la razón de que cada especie o cultivar cuente con un intervalo propio de temperatura para su germinación óptima. Por ejemplo, en Baccharis dracunculifolia (Asteraceae Bercht. y J. Presl.), que se usa con fines ornamentales o medicinales, el intervalo de temperaturas para su germinación óptima es de 20 a 28 °C, fuera de estos valores, la germinación disminuye y por encima de los 35 °C se inhibe (Manfreda et al., 2020). Para Dahlia en su fase de plántula, las temperaturas cardinales Tb, base o mínima; To, óptima y Tc, máxima o umbral son de 5.5, 24.6 y 34.9 °C (Brondum y Heins, 1993).
Las temperaturas cardinales que se registran durante la germinación de las semillas se pueden tomar como referencia para proponer fechas y lugares de siembra fuera de los sitios de colecta (Windauer et al., 2007; Calzada-López et al., 2014). Al respecto, Caroca et al. (2016) indican que, las semillas germinadas entre 0 y 35 °C prosperarán en zonas templadas, pero las que lo hicieron entre 10 y 45 °C se desarrollarán mejor en zonas tropicales.
En Dahlia coccinea y D. campanulata, el conocimiento de sus temperaturas cardinales puede ser utilizado para sugerir sitios de establecimiento, ya que éstos podrían ser más exitosos si las temperaturas de su ambiente son similares a las de su sitio de origen. Por ello, el objetivo de esta investigación fue evaluar el efecto de ocho temperaturas (5, 10, 15, 20, 25, 30, 35 y 40 °C) en la germinación total, germinación media (T50), velocidad de germinación y temperaturas cardinales de D. coccinea y D. campanulata.
La hipótesis que la sustenta es: como las especies de Dahlia estudiadas tienen distribución contrastante, se espera que, una de ellas muestre los mayores intervalos de temperaturas para la germinación de sus semillas.
Trescientas semillas de Dahlia coccinea y Dahlia campanulata fueron colectadas en la Reserva Ecológica Tlalpuente, Tlalpan, Ciudad de México en 2023. Primeramente, se corroboró la viabilidad de las semillas con los protocoles descritos por ISTA (2005) y se obtuvo que, en ambas especies la germinación fue de 95.8 ± 2.5 %.
Las unidades experimentales consistieron en 80 cajas petri de 100 x 15 mm, con dos discos dobles de papel absorbente en su base, humedecidos con 8 ml de agua destilada y 25 semillas de D. coccinea o D. campanulata (Figura 1).
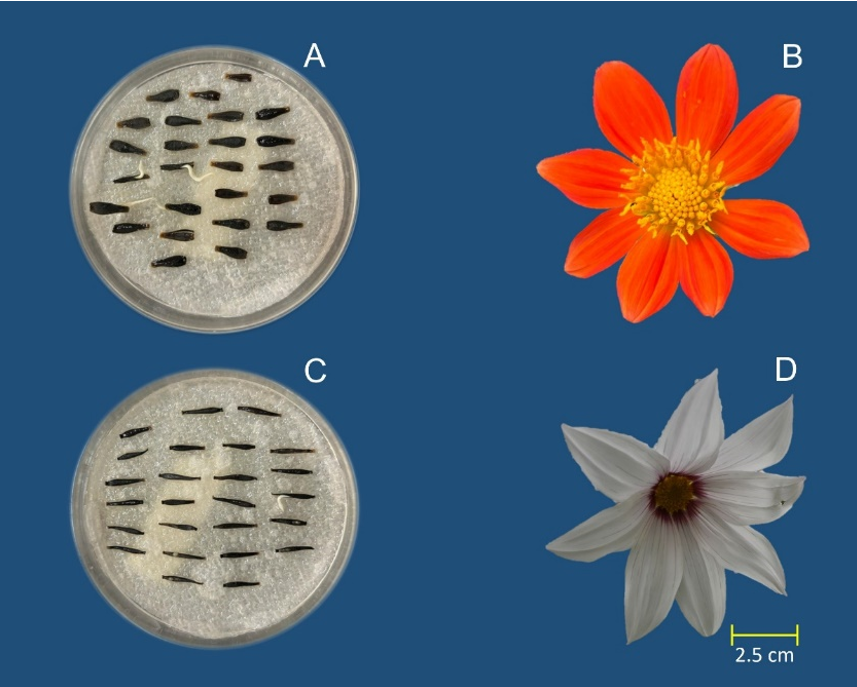
Para cada especie se tuvieron 40 unidades experimentales que se colocaron, en grupos de cinco en incubadoras ajustadas a las temperaturas de cada tratamiento; es decir, 5, 10, 15, 20, 25, 30, 35 y 40 ±2 °C. En cada caja petri se evaluó.
Germinación total: por 15 días se registró el número de semillas germinadas diariamente, los resultados en porcentaje se calcularon con la ecuación propuesta por Sampayo-Maldonado et al. (2017).
Germinación media (T50): en cada tratamiento se contabilizaron los días en que se obtuvo el 50% de semillas germinadas y se obtuvieron los modelos para calcular los valores de T50 (Ordoñez-Salanueva et al., 2015).
Velocidad de germinación: a partir del número de semillas germinadas se obtuvo la velocidad de germinación con la ecuación reportada por Calzada-López et al. (2014).
Temperatura base (Tb): con el software TableCurve 2D v.3 se calculó, en percentiles, el tiempo para la germinación de D. coccinea y D. campanulata y con el procedimiento descrito por Ellis et al. (1986) se obtuvo el valor de Tb.
Temperatura máxima (Tc) y temperatura óptima (To): con el mismo software y los procedimientos descritos por Hardegree (2006) se obtuvieron los valores de Tc y To.
Análisis estadístico: a los valores de germinación total y velocidad de germinación se les aplicó análisis de varianza de un factor y pruebas de comparación de medias (Tukey p≤ 0.05) con el software SAS® v. 9.0 para Windows. Los datos en porcentaje fueron transformados a arcoseno para su análisis y restituidos para su interpretación.
Germinación total: en Dahlia coccinea, el mejor tratamiento para la germinación fue el de 25 °C, ya que con este se obtuvo el 93.6% de semillas germinadas, pero disminuyó a 83% cuando las temperaturas fueron de 20 o 15 °C. Mientras que, Dahlia campanulata tuvo cuatro tratamientos (10, 15, 20 y 25 °C) con el porcentaje de germinación más alto y que fluctúo entre 86 y 92%. Fuera de estos intervalos, el número de semillas germinadas disminuyó en ambas especies (Cuadro 1).
Para cada especie o variedad existen temperaturas o intervalos de temperatura en los cuales se obtienen los valores de germinación más altos (≥ 80%) y representan los mejores tratamientos. Por ejemplo, en Physalis philadelphica ocurre entre 15 y 35 °C, mientras que, en Baccharis dracunculifolia, ornamental endémica de Sudamérica, los porcentajes más altos se obtienen con temperaturas de 20 a 28 °C (Calzada-López et al., 2014; Manfreda et al., 2020).
En D. campamulata, los porcentajes de germinación más altos se obtuvieron con temperaturas de 10, 15, 20 o 25 °C, lo cual podría estar relacionado con las temperaturas del ambiente donde se desarrolla, mismas que fluctúan de 8 a 15 °C. Mientras que, la germinación más alta de D. coccinea ocurrió a 25 °C y de igual manera pudo estar relacionada con la temperatura de su hábitat que oscila entre 3 y 30 °C (Garzón-Solis et al., 2009; Castro-Castro et al., 2012).
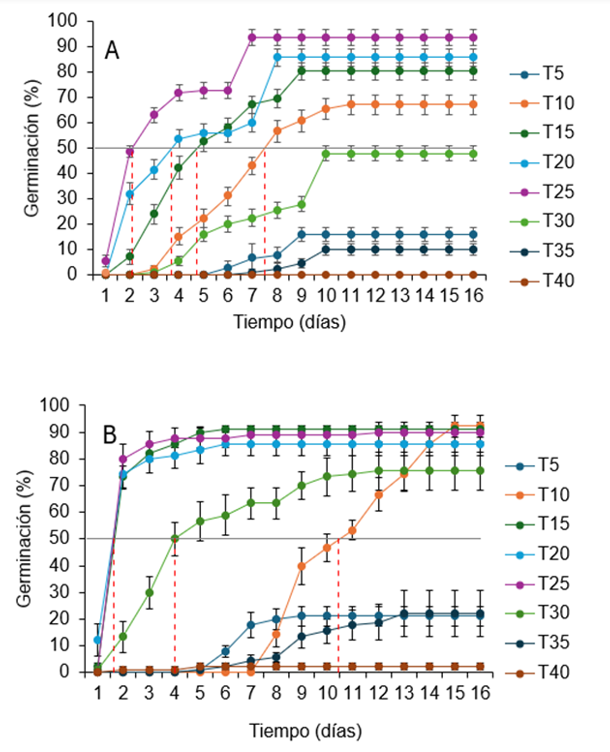
Germinación media (T50): en D. coccinea, el valor de T50 más rápido (2 días) se obtuvo a 25 °C, mientras que, a 20, 15 o 10 °C, la germinación media se presentó a los 3.7, 4.8 y 7.6 días respectivamente. Con 5, 30, 35, 40 o 45 °C los valores de T50 no fueron alcanzados en esta especie. En D. campanulata, el valor de T50 fue obtenido en 1.35 días para las semillas que se germinaron a 15, 20 o 25 °C, mientras que con 5, 35 o 40 °C la germinación media no fue alcanzada (Figura 2).
Durante la imbibición y reactivación del metabolismo celular, la exposición a bajas (≤ 5 °C) o altas (≥ 30 °C) temperaturas puede provocar la muerte del embrión, ya que se afectan procesos como síntesis de giberelinas, formación de RNAm o degradación de enzimas que participan en la translocación de energía hacia el embrión (Rosa et al., 2004; Taiz y Zeiger, 2010).
En esta investigación, antes de la aplicación de los tratamientos la viabilidad de las semillas fue de 95.8 ±2.5%. Lo que descarta la posibilidad de que la germinación media en los tratamientos de 5, 35 o 40 °C haya ocurrido por semillas vanas y fortaleció la hipótesis de muerte del embrión por temperaturas extremas.
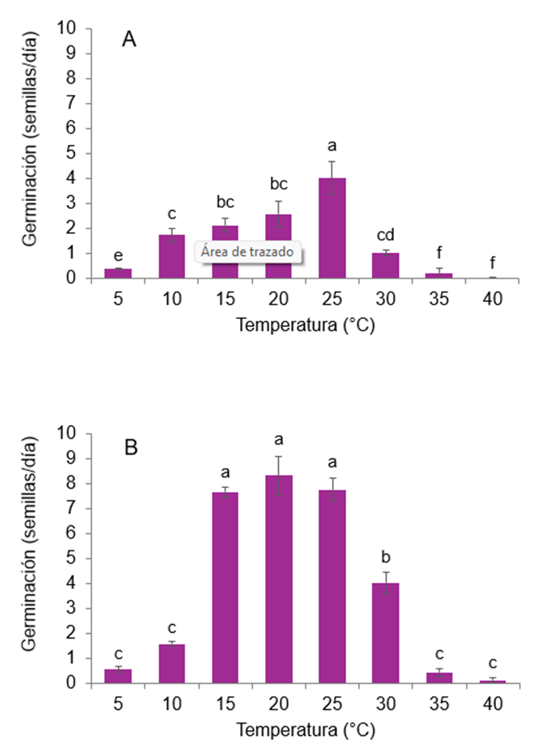
Velocidad de germinación: en D. coccinea, la velocidad de germinación más alta (4.01 semillas día-1) ocurrió a 25 °C. y disminuyó con temperaturas por debajo o por encima de este valor. Por ejemplo, a 5 o 35 °C, la germinación fue de 0.4 y 0.2 semillas día-1. De manera contrastante, D. campanulata duplicó su velocidad de germinación (8 semillas día-1) con respecto a D. coccinea y se presentó desde 15 hasta 25 °C (Figura 3).
Las temperaturas de imbibición pueden afectar la velocidad de germinación. Por ejemplo, en Physalis philadelphica germinan de 17.3 a 21.6 semillas h-1 cuando se imbiben entre 20 y 35 °C. Mientras que, en Chenopodium quinoa var. Suyana la velocidad mayor (7.4 semillas h-1) ocurre a 30 °C, pero en ‘Tunkahuan’ el intervalo con mayor velocidad de germinación (6.6 semillas h-1) es más amplio, ya que va de 30 a 40 °C (Calzada-López et al., 2014; Ramírez-Santiago et al., 2020).
Comparado con D. coccinea o D. campanulata estás velocidades podrían ser demasiado rápidas. Sin embargo, las semillas de P. philadelphica y C. quinoa son entre 50 y 100 veces más pequeñas que las de ambas especies de Dahlia, lo que implicaría menos área de endospermo para ser hidratada y reiniciar el metabolismo celular (Taiz y Zeiger, 2010).
Las temperaturas cardinales (Tb, To y Tc) para la germinación de D. coccinea fueron: 3.3 ±2.7, 24.1 ±1.1 y 35.3 ±1. Para las temperaturas subóptimas y supraóptimas se obtuvieron las ecuaciones:
que explican en 98 y 86% la variación de la tasa de germinación.En D. campanulata las Tb, To y Tc fueron 2.3 ±0.5, 22.5 ±0.5 y 38.4 ±0.5. Para las temperaturas subóptimas y supraóptimas las ecuaciones fueron
que explican en 73 y 99% la variación de la tasa de germinación en esta especie (Figura 4).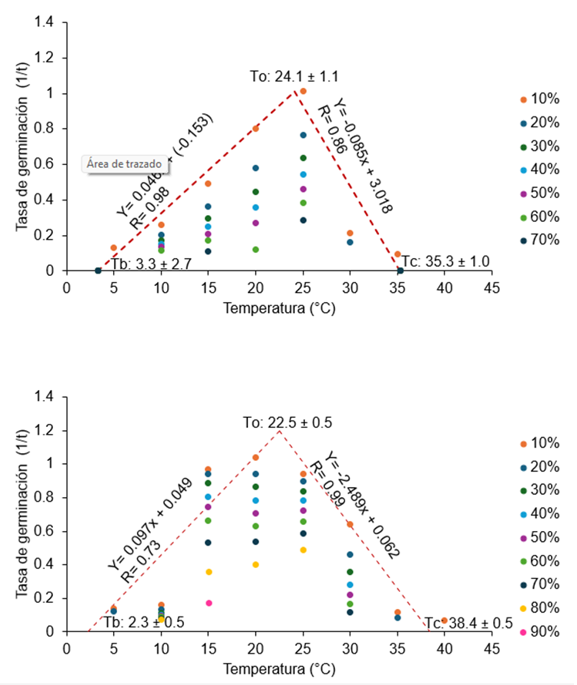
Los valores de las temperaturas cardinales son importantes porque se pueden tomar como referencia para inferir sitios de siembra o establecimiento fuera de los sitios de colecta (Singh et al., 2008). Al respecto, Cave et al. (2011) mencionan que las temperaturas cardinales de Brunonia australis Sm. ex R. Br. y Calandrinia sp., son de 5.2, 21.6, 35.9 y 6.8, 22.5, 42.7 °C que corresponden a Tb, To y Tc respectivamente.
Agregan que, por los valores de las temperaturas mínimas (5.2 y 6.8 °C) se puede decir que ambas especies tienen potencial para germinas en ambientes con temperaturas frías. Respuesta similar se presentó en D. coccinea y D. campanulata. Sin embargo, estas también pueden germinar con temperaturas cercanas a los 30 °C.
El intervalo óptimo de germinación es único para cada especie y la exposición de las semillas a temperaturas subóptimas o supraóptimas afecta negativamente en la emergencia de la radícula. Sin embargo, aquellas que mantengan valores altos de germinación sub o supraóptima contribuirán con mayor número de individuos y su variabilidad genética aumentaría las posibilidades de que las plántulas se establezcan en ambientes fríos o cálidos (Mamedi et al., 2017).
En este caso, las temperaturas cardinales (Tb, To y Tc) de ambas especies difieren por 1 o 3 °C, lo cual indica que tanto D. coccinea como D. campanulata pueden germinar con temperaturas sub o supraóptimas. Con la ventaja en D. campanulata hacia las temperaturas bajas y con esto se corrobora la hipótesis inicialmente planteada; es decir, una de las dos especies tiene mejor de germinación al estrés por temperatura.
Las semillas de Dahlia coccinea tienen germinación alta (94%) con valor de T50 alcanzado dos días después de la incubación y velocidad de emergencia de 4 semillas día-1 únicamente a 25 °C. Sin embargo, las de Dahlia campanulata tienen alto porcentaje de germinación (90%) desde 10 hasta 25 °C, con T50 alcanzado en solo un día y velocidades de germinación de 8 semillas día-1 de 15 a 25 °C.
La temperatura óptima para la germinación de Dahlia coccinea es de 24.1 °C, pero sus semillas pueden germinar desde 3.3 hasta 35.3 °C. Mientras que, Dahlia campanulata tiene una óptima de 22.5 pudiendo germinar de 2.3 hasta 38.4 °C. Fuera de estos intervalos la germinación no ocurrirá en ninguna de las dos especies.
El cultivo de estas especies como plantas ornamentales fuera de su hábitat natural puede ser exitoso si ocurre dentro de los intervalos de temperatura aquí descritos y será mayor mientras más próximo a sus temperaturas óptimas sean cultivadas.
A la Facultad de Estudios Superiores Iztacala (FES-Iztacala) por el financiamiento anual que aporta para la realización de proyectos en las unidades de investigación.
Calzada-López, S. G.; Kohashi-Shibata, J.; Uscanga-Mortera, E.; García-Esteva, A. and Yáñez-Jiménez, P. 2014. Cardinal temperatures and germination rate in husk tomato cultivars. Revista Mexicana de Ciencias Agrícolas. 8:1451-1458. https://www.scielo.org.mx/pdf/remexca/v5nspe8/2007-0934-remexca-5-spe8-1451-en.pdf.
Ellis, R. H.; Covell, S.; Roberts, E. H. and Summerfield, R. J. 1986. The influence of temperature on seed germination rate in grain legumes. II. Intraspecific variation in chickpea (Cicer arietinum L.) at constant temperatures. Journal of Experimental Botany. 37(10):1503-1515. https://doi.org/10.1093/jxb/37.10.1503.
Garzón-Solis, C.; Mejía-Muñoz, J. M.; Trejo-Calzada, R.; Gómez-Lorence, F.; Espinosa-Flores, A. y Sánchez-Abarca, C. 2009. Fenología de la dalia campanulata (Dahlia campanulata Saar.): nueva especie para la horticultura ornamental. Revista Chapingo Serie Zonas Áridas. 8(1):19-24. https://www.redalyc.org/articulo.oa?id=455545064003.
Ghío, N.; Marinoni, L.; Castro, D.; Zabala, M.; Micheloud, N. G. y Buyatti, M. 2021. Evaluación del comportamiento germinativo de tres especies vegetales nativas con potencial ornamental del centro-norte santafesino. Fave. Sección Ciencias Agrarias. 20(1):175-188. https://www.scielo.org.ar/pdf/fave/v20n1/1666-7719-fave-20-01-175.pdf.
Ordoñez-Salanueva, C. A.; Seal, C. E.; Pritchard, H. W.; Orozco-Segovia, A.; Canales-Martínez, M. and Flores-Ortíz, C. M. 2015. Cardinal temperatures and thermal time in Polaskia Beckeb (Cactaceae) species: effect of projected soil temperature increase and nurse interaction on germination timing. Journal of Arid Environments. 115:73-80. https://doi.org/10.1016/j.jaridenv.2015.01.006.
Rosa, M.; Hilal, M.; González, J. A. and Prado, F. E. 2004. Changes in soluble carbohydrates and related enzymes induced by low temperature during early developmental stages of quinoa (Chenopodium quinoa) seedlings. Journal of Plant Physiology. 161(6):683-689. https://doi.org/10.1078/0176-1617-01257.
Salinas-Rodríguez, M. M.; Hernández-Sandoval, L.; Carrillo-Reyes, P.; Castillo-Gómez, H. A.; Castro-Castro, A.; Estrada-Castillón, E.; Figueroa-Martínez, D. S.; Gómez-Escamilla, I. N.; González-Elizondo, M; Gutiérrez-Ortega, J. S.; Hernández-Rendón, J.; Munguía-Lino, G.; De- Nova, J. A.; Ortiz-Brunel J. P.; Rubio-Méndez, G.; Ruiz-Sánchez, E.; Sánchez-Sánchez, C.; Sandoval-Mata, T. N.; Soltero-Quintana, R.; Steinmann, V.; Valencia A. S. y Zamudio-Ruíz, S. 2022. Diversidad de plantas vasculares de la provincia fisiográfica de la Sierra Madre Oriental, México. Botanical Sciences. 100(2):469-492. https://doi.org/10.17129/botsci.2864.
Sampayo-Maldonado, S.; Castillo-Martínez, C. R.; Jiménez-Casas, M.; Sánchez-Monsalvo, V.; Jasso-Mata, J. y López-Upton, J. 2017. Germinación in vitro de semillas de Cedrela odorata L. de genotipos extintos. Agro Productividad. 10(8):53-58. https://revista-agroproductividad.org/index.php/agroproductividad/es/article/view/1075/921.