elocation-id: elocation-id: e4188
La propagación in vitro de Fragaria × ananassa mediante callos organogénicos es una vía eficiente para regenerar brotes y plantas completas. Este estudio evaluó el efecto de distintas combinaciones de reguladores de crecimiento, polisacáridos hidrosolubles y fosfoproteínas en la inducción de callos a partir de explantes foliares de los cultivares festival y CP-Jacona. Se probaron seis tratamientos con diferentes concentraciones de ANA, 2,4-D, BA, TDZ, MET, GA y CS. Tras 150 días se midieron sobrevivencia, porcentaje de inducción, diámetro, peso, textura del callo y su grado de desarrollo. En el cultivar Festival, el tratamiento T3 (3 mg L-¹ 2,4-D + 0.5 mg L-¹ BA) fue el más efectivo, logrando 96.3 % de sobrevivencia, 92.6 % de inducción, callos friables y buen desarrollo (61-80%). Para el cultivar CP-Jacona el tratamiento T2 (0.2 mg L-¹ 2,4-D + 1 mg L-¹ TDZ) mostró el mejor rendimiento, con 96.3% de sobrevivencia e inducción, callos friables y desarrollo en el mismo intervalo (61-80%). En ambos cultivares, los callos diferenciaron brotes utilizando medios específicos, en festival el MS + 1.5 mg L-¹ 2,4-D + 0.25 mg L-¹ BA y CP-Jacona el MS + 0.1 mg L-¹ 2,4-D + 0.5 mg L-¹ TDZ + 1 mg L-¹ BA. Los protocolos específicos aplicados permitieron una inducción y diferenciación exitosa de callos organogénicos en fresa, representando una alternativa viable para su propagación y mejoramiento genético.
auxina, callogénesis, citoquinina, organogénesis indirecta, TDZ, 2,4 D.
La fresa (Fragaria × ananassa Duch.) es un cultivo de alto valor comercial, industrial y nutracéutico. En México, para 2023 se reportaron 15 267 ha cosechadas con 641 552 t, situando al país entre los principales productores y exportadores; destacan Michoacán, Guanajuato y Baja California.
Las exportaciones de fruta fresca superaron 184 000 t y 748 000 000 USD, con Estados Unidos de América como principal destino y demanda creciente también en Europa (USDA ERS, 2023; SIAP, 2025). La propagación tradicional por estolones, aunque común, es lenta, costosa y propensa a transmitir patógenos, afectando la uniformidad y el vigor de las plantas (Gaston et al., 2020).
En contraste, el cultivo in vitro permite micropropagación rápida, producción a gran escala y obtención de material libre de patógenos (Thorpe, 2007). La organogénesis de novo depende de fitohormonas exógenas (Duclercq et al., 2011; Ikeuchi et al., 2019). En Arabidopsis thaliana el callo se induce en un medio de inducción de callo (CIM, Callus Induction Medium) con una alta relación auxina/citoquinina y los brotes se inducen en un medio de inducción de brotes (SIM, Shoot Induction Medium) con relación inversa de estos reguladores (Skoog y Miller, 1957).
En fresa, la organogénesis indirecta vía callo ha sido ampliamente documentada en distintos cultivares y tipos de explante, siendo clave la proporción auxina-citoquinina: relaciones altas de auxina favorecen la callogénesis, mientras que proporciones mayores de citoquinina promueven la brotación (Palei et al., 2017; Liu et al., 2022). Combinaciones como 2,4-D + BA, NAA + BA y reguladores de fuerte actividad citocinínica como TDZ han mostrado altas tasas de inducción de brotes (Haddadi et al., 2013; Kaur et al., 2021; Suminar et al., 2024).
De forma paralela, mecanismos epigenéticos como la metilación del ADN y la remodelación de la cromatina regulan la desdiferenciación y la adquisición de competencia celular; inhibidores como la 5-azacitidina reducen la callogénesis y la regeneración, evidenciando que una cromatina más abierta es necesaria para la reprogramación (Lee et al., 2018; Liu et al., 2022).
En Arabidopsis, la pluripotencia durante la desdiferenciación surge de la interacción entre auxina, reprogramación transcripcional y remodelación cromatínica; la auxina, vía ARF-LBD, activa genes como PLT y WOX, estableciendo la competencia regenerativa (Sugimoto et al., 2010; Kareem et al., 2015; Lee y Seo, 2018). Este proceso se consolida mediante regulación epigenética dinámica (Ikeuchi et al., 2016; Ikeuchi et al., 2018).
En fresa, la callogénesis depende de la relación auxina/citocinina y del estado del explante (Passey et al., 2003; Debnath, 2006). El estudio evalúa cómo el CIM modula estas redes hormonales y epigenéticas variando distintas concentraciones de reguladores de crecimiento, polisacáridos hidrosolubles y fosfoproteínas en el medio para inducir callos a partir de hojas jóvenes de brotes in vitro de los cultivares festival y CP Jacona.
El estudio se realizó en el laboratorio de biotecnología y estructura de frutales del Colegio de Postgraduados, Campus Montecillo, Texcoco, Estado de México, 2023-2025; 19.4605° latitud norte, 98.9030° longitud oeste y 2 250 msnm.
Se utilizaron plántulas in vitro de Fragaria × ananassa cvs. festival y CP-Jacona obtenidas de ápices meristemáticos (~400 µm) de coronas de plantas hijas de invernadero. Los explantes se establecieron en medio MS (Murashige y Skoog, 1962) con 0.5 mg L-¹ BA + 0.5 mg L-¹ IBA, a 25 ±2 °C y fotoperiodo de 16 h luz 8 h oscuridad a 25 ±2 °C durante 30 días. La multiplicación de brotes se realizó en MS con 1 mg L-¹ BA + 0.1 mg L-¹ IBA realizando subcultivos mensuales durante ocho meses.
Para inducir callos se utilizaron segmentos foliares (~1 cm2) colocados con la superficie abaxial en medio MS (100%) con combinaciones de auxinas (ANA, 2,4-D), citoquininas (BA, TDZ, metatopolina [MET]), arabinogalactano (GA) y caseína hidrolizada (CS).
Los callos formados se transfirieron a medios de inducción de brotes (SIM). Para festival se utilizó MS (100%) con 1.5 mg L-¹ de 2,4-D y 0.25 mg L-¹ de BA; para CP-Jacona, MS (100%) con 0.1 mg L-¹ de 2,4-D, 0.25 mg L-¹ de TDZ y 1 mg L-¹ de BA.
Para la inducción de callos organogénicos en dos cultivares de fresa se evaluaron seis tratamientos: T1 (4 mg L-¹ ANA + 0.4 mg L-¹ MET + 1 mg L-¹ GA + 50 mg L-¹ CS), T2 (0.2 mg L-¹ 2,4-D + 1 mg L-¹ TDZ), T3 (3 mg L-¹ 2,4-D + 0.5 mg L-¹ BA), T4 (1 mg L-¹ 2,4-D + 0.1 mg L-¹ BA), T5 (2 mg L-¹ ANA + 0.5 mg L-¹ BA) y T6 (4 mg L-¹ ANA + 0.4 mg L-¹ BA + 1 mg L-¹ GA +50 mg L-¹ CS) (Karim et al., 2011; Palei et al., 2017; Roy et al., 2018).
El medio de cultivo se solidificó con agar (5 g L-¹) y sacarosa al 3% como fuente de carbono; el pH se ajustó a 5.7 antes de esterilizar en autoclave a 120 °C y 15 psi durante 20 min. En condiciones estériles, se colocaron cuatro segmentos foliares (1 cm2) por caja de Petri con la superficie abaxial en contacto con el medio. Los explantes se incubaron en oscuridad a 25 ±2 °C por 120 días, con subcultivos mensuales; posteriormente se mantuvieron a fotoperiodo 16 h luz 8 h oscuridad con iluminación LED (92.1 μmol m-² s⁻¹) por 30 días.
Se realizaron experimentos independientes por cultivar. El diseño experimental fue completamente al azar (DCA) con seis tratamientos y 27 repeticiones, evaluando un total de 162 unidades experimentales; cada unidad experimental correspondió a una caja de Petri con cuatro explantes foliares (~1 cm2).
Después de 150 días en los medios de cultivo se evaluaron las variables: supervivencia (%), inducción de callo (%), textura del callo (friable o compacto, %), grado de desarrollo (%) mediante una escala ordinal de cinco niveles (1-20, 21-40, 41-60, 61-80 y 81-100%), diámetro del callo (cm) medido con vernier de 150 mm (Adir®, modelo 11684) y peso fresco del callo (g) con una balanza analítica (ADAM®, modelo PW 254).
Se evaluó cómo distintos reguladores de crecimiento, con o sin GA y CS, influyen en la inducción y desarrollo de callos organogénicos a partir de hojas de los cultivares de fresa festival y CP-Jacona. Los resultados se presentan por variable de respuesta con su interpretación fisiológica y molecular.
Los tratamientos T2 a T6 presentaron los mayores porcentajes de sobrevivencia (81.5-96.3%) e inducción de callo (77.7-96.3%) en ambos cultivares, sin diferencias significativas entre ellos (Figura 1 y 2). En contraste, T1 registró los valores más bajos para ambas variables.
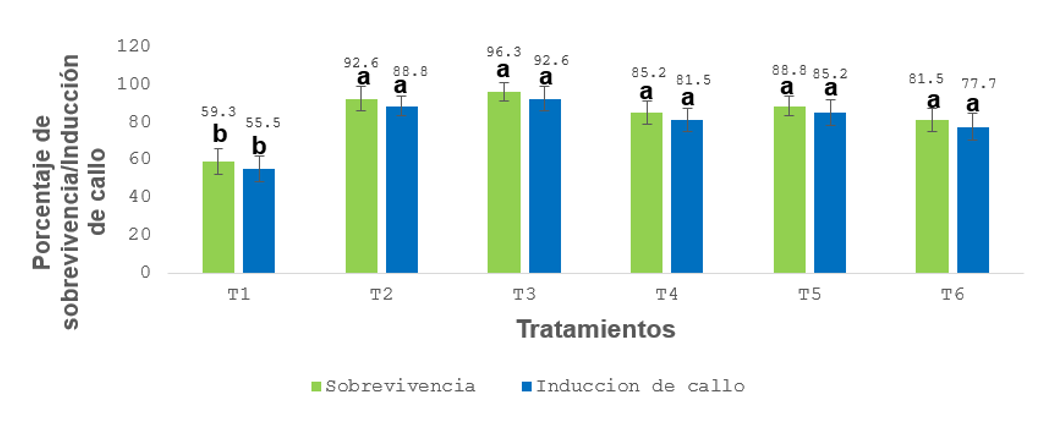
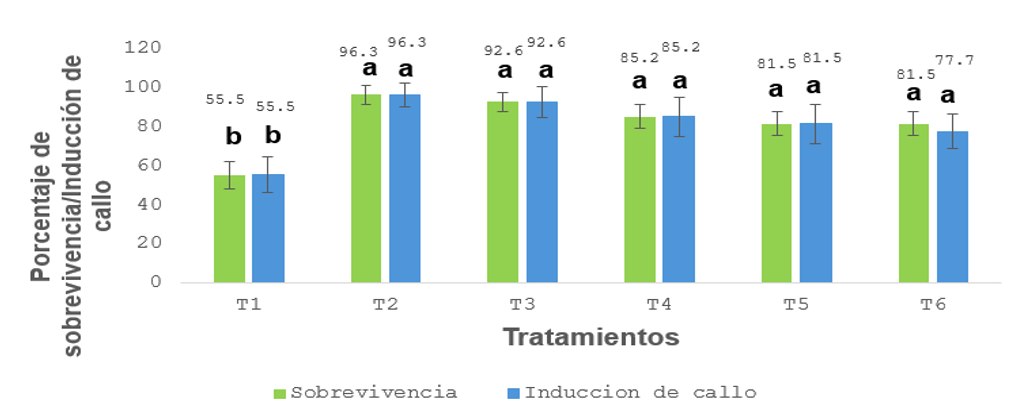
Estos resultados sugieren que distintas combinaciones de auxinas (2,4-D o ANA) y citoquininas (BA o TDZ) pueden promover respuestas morfogénicas similares, siempre que se mantenga un balance hormonal adecuado para favorecer la desdiferenciación celular y la formación de callo.
La ausencia de diferencias entre los tratamientos T2, T3, T4, T5 y T6 indica que las concentraciones evaluadas de auxinas y citoquininas fueron suficientes para inducir una respuesta callogénica eficiente en los explantes foliares de fresa.
Aunque los tratamientos difirieron en el tipo y concentración de reguladores de crecimiento, todos mantuvieron una interacción auxina-citoquinina favorable para estimular la división celular y la proliferación de tejido callogénico.
Resultados similares han sido reportados en fresa, donde la respuesta morfogénica se atribuye a la elevada sensibilidad hormonal asociada con su naturaleza octoploide (Infante et al., 1998).
Resultados similares han sido reportados, donde diferentes combinaciones de auxinas y citocininas, como BAP e IBA, favorecieron la inducción de callo y la regeneración de brotes en explantes foliares de fresa (Yeasmin et al., 2022).
Asimismo, se ha reportado que combinaciones de 2,4-D con BA inducen la formación de callo compacto y favorecen la regeneración de brotes adventicios en fresa (Chomboon y Lohasupthawee, 2022), mientras que la combinación de 2,4-D y TDZ puede alcanzar tasas de inducción de callo cercanas al 100% en explantes foliares de Fragaria vesca (Chung y Ouyang, 2021).
Además del control hormonal, la desdiferenciación hacia callo requiere modificaciones epigenéticas, como la reprogramación de H3K27me3 y cambios en la metilación del ADN, esenciales para adquirir competencia celular (Ishihara et al., 2019). En este estudio, la caseína hidrolizada y las proteínas arabino galactano no mostraron efectos significativos, indicando que bajo las condiciones evaluadas el eje auxina-citoquinina es el principal regulador de la inducción de callo.
El mayor diámetro de callo se obtuvo en festival con T3 y en CP-Jacona con T2, respuesta atribuida a las diferencias en los genotipos (Cuadro 1). Resultados similares en Fragaria indican que combinaciones de auxina y citoquinina, especialmente aquellas que incluyen TDZ, incrementan el crecimiento por su alta actividad morfogénica (Landi y Mezzetti, 2006; Chung y Ouyang, 2021).
Estos patrones concuerdan con reportes que señalan la eficacia de mezclas 2,4-D + BA en la acumulación de biomasa (Ara et al., 2012). En este estudio no se detectaron efectos positivos de caseína hidrolizada, goma arábiga ni de la MET bajo las condiciones evaluadas.
El peso fresco fue mayor con T3 en el cultivar festival y T2 en CP-Jacona (Cuadro 1), indica que existe una respuesta diferencial a la sensibilidad hormonal debido a la constitución genética de las variedades. Resultados previos en fresa muestran incrementos de biomasa con combinaciones de auxina y TDZ, atribuibles a su estímulo proliferativo dependiente del genotipo (Cappelletti et al., 2016).
La textura fue friable en ambos cultivares y en todos los tratamientos, rasgo asociado a alto potencial organogénico (Cuadro 1). En fresa, Biswas et al. (2007) observaron callos friables con 1 mg L-¹ 2,4 D + 0.5 mg L-¹ BA, destacando que la concentración de reguladores y el órgano de origen del explante inciden en la división celular y desdiferenciación que conducen a la friabilidad.
La Figura 3A y 3B se muestra que en ambos cultivares el T2 y T3 lograron el mayor desarrollo de callo, esto es que se alcanzó más del 40% en festival y hasta 88% en CP-Jacona. En otros sistemas, combinaciones 2,4-D + BA favorecen este desarrollo al reducir la lignificación de pared celular y permitir mayor expansión del tejido (Riaz et al., 2016; Bollati et al., 2025).
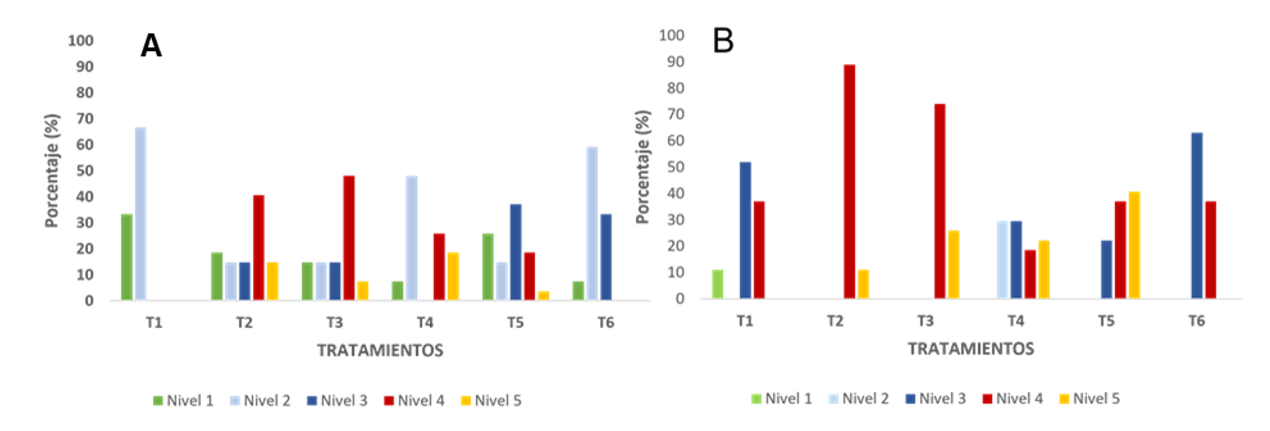
En este estudio, la fuerte actividad citocinínica del TDZ en T2 probablemente contribuyó al máximo desarrollo obtenido, indicando que la sinergia 2,4-D + TDZ/BA fue determinante bajo las condiciones evaluadas.
Los resultados muestran que la respuesta morfogénica en fresa depende de la interacción entre auxinas, citoquininas y el genotipo (Figura 4). Las combinaciones 2,4-D + TDZ (T2) y 2,4D + BA (T3) fueron las más eficientes para lograr alta sobrevivencia, inducción, desarrollo y biomasa de callos friables, consolidándose como estrategias robustas para regeneración in vitro.
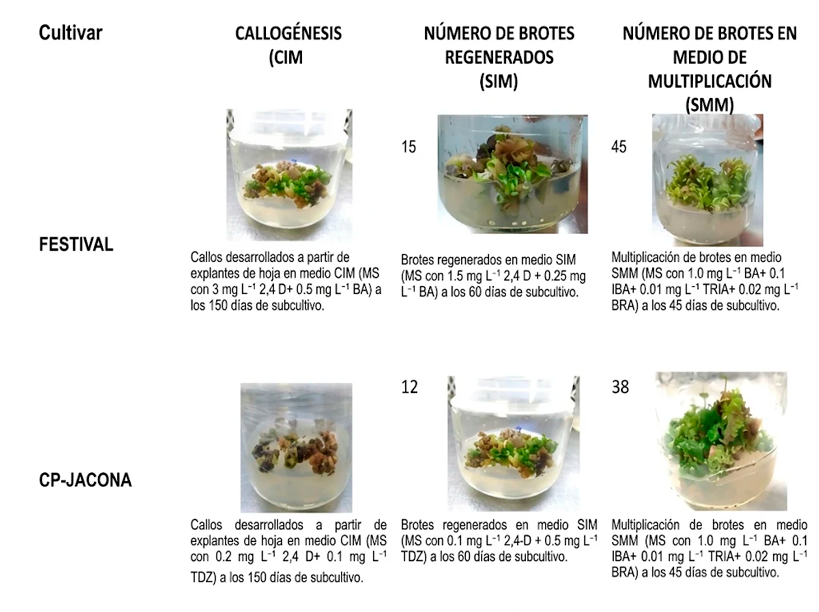
CS y AGP no mostraron efectos bajo estas condiciones, indicando que el control hormonal es el factor predominante. Mecanísticamente, la auxina impulsa la desdiferenciación, mientras la citoquinina mantiene la competencia organogénica mediante la accesibilidad de genes de identidad del brote, en coordinación con ajustes epigenéticos como H3K27me3 y metilación del ADN (Ishihara et al., 2019).
Las diferencias entre cultivares sugieren que CP-Jacona responde mejor a un tono citocinínico alto, mientras festival se beneficia de mayor auxina + BA, en concordancia con la plasticidad hormonal previamente descrita en fresa (Haddadi et al., 2013; Palei et al., 2017; Liu et al., 2022).
T2 (2,4-D + TDZ) y T3 (2,4-D + BA) fueron los tratamientos más eficientes, con alta supervivencia, fuerte inducción y mayor biomasa, mostrando respuesta genotipo-dependiente: festival optimizó con T3 y CP-Jacona con T2. La auxina impulsa la desdiferenciación y la citoquinina mantiene la competencia organogénica, apoyadas por la reprogramación epigenética que restaura la pluripotencia celular. GA y CS no tuvieron efecto bajo estas condiciones.
PVF agradece a SECIHTI por la beca de doctorado durante la realización de este proyecto.
Bollati, S. A.; Pérez-da Graça, J.; Silvente, S. T. and Conci, V. C. 2025. Optimization of culture media and environmental conditions for somatic embryogenesis in olive (Olea europaea L.) cultivars ‘Arbequina’ and ‘Picual’. Journal of the Saudi Society of Agricultural Sciences. 24(4):1-14. https://doi.org/10.1007/s44447-025-00037-4.
Infante, R.; Mazzara, M. and Rosati, P. 1998. Growth estimation of in vitro cultured callus and plant regeneration from leaf disk and petiole callus of musk strawberry (Fragaria moschata Duch.) Journal of the Japanese Society for Horticultural Science. 67(1):39-43. https://doi.org/10.2503/jjshs.67.39.
Kareem, A.; Durgaprasad, K.; Sugimoto, K.; Du, Y.; Pulianmackal, A. J.; Trivedi, Z. B.; Abhayadev, P. V.; Pinon, V.; Meyerowitz, E. M.; Scheres, B. and Prasad, K. 2015. Plethora genes control regeneration by a two-step mechanism. Current Biology. 25(8):1017-1030. https://doi.org/10.1016/j.cub.2015.02.022.
Karim, M. R.; Aziz, M. A.; Roy, U. K.; Hoque, M. A. and Hossain, M. M. 2011. In vitro response of strawberry (Fragaria × ananassa Duch.) for callus induction and shoot regeneration. International Journal of Agronomy and Agricultural Research. 1(1):29-36. https://api.semanticscholar.org/CorpusID:86188503.